

اثرات تعدیلی داروهای گیاهی چینی بر متابولیسم انرژی در بیماری های ایسکمیک قلبی بخش Ⅰ
Mar 04, 2022
برای اطلاعات بیشتر:ali.ma@wecistanche.com
فانگه لی، جینمائو لی، سایسای لی، شوون گوو و پینگ لی
1 سومین بیمارستان وابسته، دانشگاه پزشکی چینی پکن، پکن، چین،
2 بیمارستان فانگشان، دانشگاه پزشکی چینی پکن، پکن، چین
بیماری ایسکمیک قلب (IHD)، یک مشکل عمده بهداشت عمومی جهانی، با عوارض و مرگ و میر بالایی همراه است. اگرچه بهترین روش های مدرن در کاهش عوارض و مرگ و میر موثر بوده اند، پیش آگهی ضعیف بیماران مبتلا به IHD یک نگرانی بالینی اصلی باقی مانده است. متابولیسم انرژی قلبی به طور فزاینده ای به عنوان نقشی در پاتوژنز IHD، القای تغییرات بستر متابولیک، اختلال عملکرد میتوکندری، اختلال در عملکرد زنجیره انتقال الکترون میتوکندری و محرومیت از انرژی قلبی شناخته شده است. عوامل دخیل در متابولیسم انرژی قلبی، اهداف درمانی بالقوه ای را برای درمان IHD فراهم می کنند. داروهای گیاهی چینی (CHMs) سابقه طولانی استفاده در پیشگیری و درمان بیماری های قلبی عروقی با چند جزء، چند هدف و چند سیگنال دارند. شواهد فزاینده نشان می دهد که داروهای گیاهی چینی ممکن است ایسکمی میوکارد را از طریق تعدیل متابولیسم انرژی قلبی بهبود بخشند. در اینجا، ما اهداف و مسیرهای احتمالی متابولیسم انرژی قلبی را برای CHM ها توصیف می کنیم و اثرات تعدیلی CHM ها را بر متابولیسم انرژی در IHD ارزیابی می کنیم. به ویژه، این بررسی بر خلاصه کردن اثرات متابولیک و مکانیسمهای اساسی داروهای گیاهی چینی (از جمله گیاهان، اجزای اصلی فعال زیستی و فرمولها) در IHD تمرکز دارد. علاوه بر این، ما همچنین محدودیتهای کنونی و چالشهای اصلی را برای تحقیق در مورد استفاده از CHMs در درمان بیماریهای قلبی عروقی مورد بحث قرار میدهیم.
Cistanche deserticola Ma، همچنین به عنوان شناخته شده استهربا سیستانچ(HC)، یک "یانگ نشاط بخش" استگیاه تونیک چینی. عصاره گیاه سیستانچبا افزایش تولید ATP میتوکندریایی در برابر آسیب ایسکمی/خونرسانی مجدد میوکارد محافظت می شود. گلوتاتیون (GSH) اولین خط دفاعی در برابر آسیب اکسیداتیو است. عصاره گیاه هربا سیستانچ ممکن است تنفس میتوکندریایی را از طریق افزایش سطح GSH میتوکندری، کاهش گلوتاتیون اکسید شده میتوکندری (GSSG)، بهبود MMP، و کاهش سطوح Ca2 پلاس میتوکندری تقویت کند (Siu and Ko, 2010). مطالعه دیگری اثر محافظتی قلبی را گزارش کردهربا سیستانچکسر (HCF1) در شرایط in vitro و in vivo. در شرایط آزمایشگاهی، HCF1 در 30 نانوگرم در میلی لیتر به طور قابل توجهی ظرفیت تولید ATP میتوکندری (ATP-GC)، تولید ROS میتوکندری و تنفس میتوکندری را افزایش داد. در داخل بدن، HCF1 به طور قابلتوجهی وضعیت GSH میتوکندری و محتوای ATP-GC را در موشهای صحرایی ماده بالغ I/R افزایش داد. با کمال تعجب، آنها دریافتند که HCF1 با دوز پایین به طور قابل توجهی سطوح ATP بافتی را در موشهای غیر I/R کاهش میدهد، در حالی که کاهش سطح ATP بافتی توسط HCF{9}} در موشهای I/R کاهش مییابد. این پدیده در موشهای غیر I/R ممکن است مربوط به جداسازی پایدار میتوکندری ناشی از HCF باشد، در حالی که در موشهای I/R ممکن است به افزایش ATP-GC توسط HCF مرتبط باشد (Wong and Ko, 2013 ). b-sitosterol (BS)، به عنوان یک ترکیب آبگریز از HCF1، سطوح LDH را کاهش داد و چرخه ردوکس گلوتاتیون سلولی را در موشهای صحرایی ماده I/R میوکارد افزایش داد. اما BS هیچ اثر قابل توجهی بر ATP-GC میتوکندری در میوکارد موش صحرایی نر یا ماده نداشت (Wong et al., 2014). بنابراین، اثرات ATP-GC میتوکندری درعصاره Cistanche deserticola Maممکن است به ترکیبات دیگری بستگی داشته باشد که نیاز به مطالعه بیشتر دارد.
برای محصولات عصاره Cistanche tubulosa کلیک کنید
کلمات کلیدی: متابولیسم انرژی، بیماری ایسکمیک قلبی، داروهای گیاهی چینی، متابولیسم قلبی، عملکرد میتوکندری
مقدمه
بیماری ایسکمیک قلب (IHD) شایع ترین علت مرگ در میان بیماری های قلبی عروقی است که بار اجتماعی و اقتصادی قابل توجهی را تحمیل می کند. مطالعه بار جهانی بیماری در سال 2017 (GBD 2017) گزارش داده است که تعداد کل مرگ و میر ناشی از IHD از 7.30 به 8.93 میلیون بین سال های 2007 و 2017 در سطح جهانی افزایش یافته است (GBD 2017 Causes of Death Colaborators, 2018). IHD عمدتاً شامل بیماری عروق کرونر قلب (شامل آنژین، انفارکتوس میوکارد غیرکشنده و مرگ کرونری)، ایسکمی بدون علامت میوکارد، مرگ ناگهانی قلبی و نارسایی ایسکمیک قلب است (وونگ، 2014؛ گوو و همکاران، 2018). رویکردهای درمانی کنونی عمدتاً به مداخلات پزشکی مانند استاتینها، داروهای ضد پلاکت، مسدودکنندههای گیرنده بتا (b-blockers) و مهارکنندههای آنزیم مبدل آنژیوتانسین (ACEIs)، علاوه بر روشهای جراحی مانند مداخلات عروق کرونر از راه پوست (PCI) وابسته هستند. و جراحی بای پس عروق کرونر (CABG). اگرچه این درمانهای پزشکی و جراحی در کاهش عوارض و مرگومیر پس از IHD مؤثر بودهاند، میلیونها بیمار هنوز علائم بالینی از جمله تنگی قفسه سینه، تپش قلب، تنگی نفس و خستگی دارند. بنابراین، توسعه استراتژیهای درمانی جدید که شامل مکانیسمهای مختلف در ایسکمی میوکارد و حتی خونرسانی مجدد است، بسیار مهم است.

متابولیسم انرژی قلبی نقش عمده ای در پیشرفت بیماری های قلبی عروقی دارد. ون بیلسن و همکاران (2004) مفهوم بازسازی متابولیک میوکارد را پیشنهاد کرد. با توسعه علم مدرن و فنآوریهای پیشرفته، تغییرات در انرژیهای میوکارد مانند تغییر در استفاده از سوبسترای انرژی، اختلال در فسفوریلاسیون اکسیداتیو میتوکندری و کاهش در انتقال و ظرفیت استفاده از آدنوزین تری فسفات (ATP) به طور فزاینده ای نقش مهمی در مکانیسم های IHD (فوکوشیما و همکاران، 2015؛ تووماینن و تاوی، 2017). محرومیت از انرژی قلبی منجر به اختلال عملکرد انقباضی قلب، بازسازی بطن چپ و حتی نارسایی قلبی (HF) می شود. در نتیجه، شواهد رو به رشدی نشان میدهد که تعدیل متابولیسم انرژی قلبی میتواند ابزار مؤثری برای بهبود عملکرد قلب و کند کردن پیشرفت به HF باشد (Neubauer, 2007؛ Lang et al., 2015؛ Qi and Young, 2015؛ Yang et al., 2016). ؛ تووماینن و تاوی، 2017). داروهای گیاهی چینی (CHMs) اخیراً به عنوان یک استراتژی درمانی بالقوه برای پیشگیری و درمان ایسکمی میوکارد از طریق تعدیل متابولیسم انرژی توجه زیادی را به خود جلب کرده اند. این یک استراتژی جدید برای محافظت از میوکارد ایسکمیک در برابر IHD است. این بررسی بر روی اثربخشی بالقوه گیاهان، اجزای اصلی فعال زیستی (MBC) و فرمولهای گیاهی چینی (CHF) در تعدیل متابولیسم انرژی قلبی در IHD و همچنین مکانیسمهای مرتبط تمرکز دارد.
اهداف و سیگنالدهی متابولیسم انرژی قلبی برای داروهای گیاهی چینی
تئوری "خون Qi" TCM با متابولیسم انرژی قلبی مرتبط است
قلب سالم بالغ نیاز به انرژی دائمی دارد و نیاز به انقباض مداوم برای تامین خون و اکسیژن بدن دارد. میتوکندری ها به عنوان نیروگاه های قلب، به طور مداوم انرژی مورد نیاز برای انقباض عضله قلب را تامین می کنند. در شرایط عادی، تقریباً تمام تولید ATP در قلب بالغ سالم از فسفوریلاسیون اکسیداتیو میتوکندری میآید و بقیه عمدتاً از گلیکولیز به دست میآیند. در قلب ایسکمیک، اختلال در فسفوریلاسیون اکسیداتیو میتوکندریایی، عرضه ناکافی ATP به قلب را فراهم می کند. شواهد موجود نشان می دهد که متابولیسم انرژی قلبی با عملکرد قلب همبستگی خوبی دارد. کاهش ظرفیت انتقال انرژی قلبی منجر به اختلال در عملکرد پمپ قلبی، اختلال در جریان خون، اختلال عملکرد انقباضی قلب و حتی نارسایی قلبی می شود (هوس و کلی، 2005). جستجوی استراتژی های درمانی برای تعدیل متابولیسم انرژی قلبی یکی از چالش های اصلی در بیماری های قلبی عروقی است.
طب سنتی چینی (TCM) با یک "مفهوم جامع" مشخص می شود که ارگانیسم به عنوان یک کل در نظر گرفته می شود. در TCM، چی و خون مواد ضروری موجودات هستند که فعالیت زندگی انسان را حفظ می کنند. Qi دارای عملکرد تقویت کننده، گرم کننده، تثبیت و حفظ است که انرژی را برای بهبود گردش خون فراهم می کند و خون را به طور مداوم در داخل رگ ها نگه می دارد. به عنوان اولین کلاسیک پزشکی چینی و خاستگاه تئوری TCM، کلاسیک داخلی امپراطور سوون زرد توضیح میدهد که قلب بر خون و عروق حکومت میکند. این بدان معنی است که Heart-Qi تشکیل و گردش خون در رگ ها را برای تغذیه اندام ها و بافت ها، حفظ تعادل مایعات بدن و حفظ فعالیت های فیزیولوژیکی طبیعی ترویج و حفظ می کند. فراوانی Heart-Qi، کافی خون و باز بودن عروق سه جزء اصلی هستند که گردش طبیعی خون را کنترل می کنند. در قلب، Heart-Qi سنتز ATP را از طریق سنتاز ATP در میتوکندری قلب هدایت می کند تا انرژی حیاتی لازم برای انقباض و آرامش عضلات قلب را فراهم کند. علائم ایسکمی میوکارد در بیماران بالینی عمدتاً شامل سفتی قفسه سینه، تپش قلب، تنگی نفس و ضعف است. این علائم ایسکمی میوکارد با علائم سندرم کمبود Qi قلب مطابقت دارد که بیشتر باعث اختلال در گردش خون و اختلال میکروسیرکولاتور قلبی می شود که منجر به سندرم استاز خون می شود. کمبود چی قلب همچنین می تواند باعث نارسایی یانگ قلب شود که با یک سری علائم مانند عرق سرد، عدم تحمل سرما و سردی اندام ها همراه است. علاوه بر این، کمبود Qi قلب میتواند باعث افزایش نفوذپذیری میکروواسکولار شود که منجر به ترشح بیش از حد مایع، خلط، ادم و خونریزی میشود. بر اساس تئوری "خون Qi" TCM، داروهای گیاهی چینی که می توانند Qi را تقویت یا تنظیم کنند و خون را فعال کنند، به عنوان یک رویکرد درمانی مهم برای تعدیل متابولیسم انرژی قلبی در قلب و عروق نویدبخش هستند.

اهداف احتمالی متابولیسم انرژی قلبی برای داروهای گیاهی چینی
داروهای گیاهی چینی، به عنوان گیاهان گیاهی طبیعی، سابقه طولانی در استفاده کلینیک در درمان بیماری های قلبی عروقی دارند و دارای خواص اهداف دارویی متعددی هستند. آنها پتانسیل بزرگ و منحصر به فردی در مدیریت متابولیسم انرژی قلبی دارند، به ویژه در جنبه های عملکرد میتوکندری، متابولیسم لیپیدها و متابولیسم گلوکز. برخی از این اهداف احتمالی در زیر توضیح داده شدهاند که بر اساس فرآیند متابولیسم انرژی قلبی طبقهبندی میشوند. فرآیند متابولیک درگیر در متابولیسم انرژی قلبی از سه جزء اصلی تشکیل شده است (شکل 1)، یعنی ترجیح سوبسترای انرژی، فسفوریلاسیون اکسیداتیو میتوکندری و انتقال و استفاده ATP (Neubauer, 2007).
استفاده از بستر انرژی اولین جزء را نشان می دهد. کاردیومیوسیت ها می توانند تمام کلاس های سوبستراهای انرژی، از جمله اسیدهای چرب، گلوکز، گلیکوژن، لاکتات، اجسام کتون و اسیدهای آمینه خاص را متابولیزه کنند (هگرمونت و همکاران، 2016). اسیدهای چرب آزاد (FFA) و گلوکز ابتدا از پلاسما وارد میوکارد می شوند و سپس به ترتیب به آسیل کوآنزیم چرب A (acyl-CoA) و محصول نهایی گلیکولیتیک پیرووات در سیتوپلاسم کاردیومیوسیت تبدیل می شوند. آسیل-CoA چرب با زنجیره بلند از طریق کارنیتین پالمیتویل ترانسفراز 1 و 2 (CPT1 و CPT2) به میتوکندری منتقل می شود، در حالی که پیرووات توسط حامل پیروات میتوکندری (MPC) به میتوکندری منتقل می شود (Arumugam et al., Noordaliet 20; ، 2018).

جزء دوم فسفوریلاسیون اکسیداتیو میتوکندری است که بیش از 95 درصد از ATP مورد نیاز قلب بالغ را تامین می کند. به طور معمول، بتا اکسیداسیون اسیدهای چرب (FAO)، منبع اصلی فسفوریلاسیون اکسیداتیو میتوکندری، بیش از دو سوم انرژی مورد نیاز در میوکارد بالغ را تامین می کند، و بقیه از طریق اکسیداسیون سوبستراهایی مانند کربوهیدرات ها، لاکتات، کتون تامین می شود. بدن و چندین اسید آمینه (هگرمونت و همکاران، 2016). این سوبسترای میتوکندری از طریق مراحل متابولیکی خاص (به ویژه اکسیداسیون اسیدهای چرب بتا و اکسیداسیون پیرووات) باعث تولید استیل کوآنزیم A (استیل-CoA) می شود که متعاقباً وارد چرخه اسید تری کربوکسیلیک (TCA) می شود (Kolwicz et al., 201). نیکوتین آمید آدنین دی نوکلئوتید (NADH) و فلاوین آدنین دی نوکلئوتید (FADH2) به ترتیب توسط چرخه TCA و بتا اکسیداسیون تولید می شوند (Schwarz et al., 2014). NADH و FADH2 الکترونهای پرانرژی را به زنجیره انتقال الکترون میتوکندری (ETC) میخورند و یک گرادیان الکتروشیمیایی را از طریق مجتمعهای ETC (مختلط IV) در سراسر غشای داخلی میتوکندری (IMM) ایجاد میکنند که متعاقباً سنتز ATP را هدایت میکند (Huss and Kelly, 2005). در میان آنها، ATP سنتاز (کمپلکس V)، به عنوان مرحله نهایی فسفوریلاسیون اکسیداتیو میتوکندری، ATP را با فسفریله کردن آدنوزین دی فسفات (ADP) تولید می کند. انتقال الکترون ها بین کمپلکس ها توسط یوبی کینون (CoQ) و سیتوکروم c (Cytc) انجام می شود. چرخه TCA علاوه بر تولید NADH و FADH2، سیترات اضافی را در سیتوزول تولید میکند، جایی که به استیل CoA تبدیل میشود (Murphy et al., 2016; Noordali et al., 2018). سیتوزولی استیل CoA بیشتر از طریق استیل CoA کربوکسیلاز (ACC) به مالونیل CoA تبدیل می شود، در حالی که مالونیل CoA، یک مهار کننده قوی CPT{17}}، می تواند از طریق مالونیل CoA دکربوکسیلاز (MCD) دوباره به استیل CoA تبدیل شود، در نتیجه ورود را تنظیم می کند. FFA یک بار دیگر وارد میتوکندری می شود (فوکوشیما و همکاران، 2015؛ نوردالی و همکاران، 2018). جزء سوم شامل انتقال و استفاده قلبی ATP از طریق سیستم کراتین کیناز (CK) است (Neubauer, 2007؛ Fukushima et al., 2015). فسفات های پرانرژی از ATP تولید شده از طریق فسفوریلاسیون اکسیداتیو در میتوکندری به کراتین (Cr) منتقل می شوند، بنابراین فسفوکراتین (PCR) و ADP با عمل کراتین کیناز میتوکندری تشکیل می شوند. فسفوکراتین به سرعت از میتوکندری به داخل میوفیبریل ها پخش می شود و سپس ATP و Cr را از طریق عملکرد کراتین کیناز میوفیبریلار اصلاح می کند (Neubauer, 2007). متعاقباً، ATP توسط میوزین ATPase برای تولید نیروی انقباض قلبی استفاده می شود، در حالی که کروم آزاد به میتوکندری منتشر می شود.
سیگنالهای رونویسی احتمالی متابولیسم انرژی قلبی برای داروهای گیاهی چینی
مکانیسمهای متابولیسم انرژی قلبی پیچیده هستند و عمدتاً توسط پروتئینهای متابولیک (آنزیمها و اجزای رونویسی) کنترل میشوند که بیان تعداد زیادی از ژنهای دخیل در متابولیسم انرژی میوکارد را از طریق مسیرهای متابولیکی متعدد تنظیم میکنند (Stanley et al., 2005). به طور خاص، ساختار و عملکرد میتوکندری توسط ژنهای متعددی تنظیم میشود، از جمله ژنهای 37 کد شده در DNA میتوکندری و تعداد قابلتوجهی که در DNA هستهای کدگذاری شدهاند (Ham and Raju, 2016). به طور فزاینده ای روشن می شود که تداخل های چندگانه هسته ای-میتوکندری و مسیرهای سیگنالینگ نقش مهمی در تنظیم متابولیسم انرژی قلبی تحت شرایط ایسکمیک دارند (Qi and Young، 2015؛ مورفی و همکاران، 2016).
داروهای گیاهی چینی همچنین می توانند مسیرهای بالقوه متعددی را به دلیل خواص چند جزئی خود تعدیل کنند. برخی از این مسیرهای ممکن در زیر توضیح داده شده است (شکل 2). پروتئین کیناز فعال شده با آدنوزین مونوفسفات (AMPK) یک حسگر انرژی درون سلولی حیاتی است و فعال شدن آن در مسیرهای سیگنال دهی متعددی از جمله تعدیل متابولیسم گلوکز و اسیدهای چرب، عملکرد میتوکندری و اتوفاژی نقش دارد (Murphy et al., 2016; Nishida and Otsu) ، 2016). AMPK از سه زیرواحد پروتئینی تشکیل شده است: یک زیر واحد کاتالیزوری، حاوی سایت Thr172 که باید برای فعال شدن AMPK فسفریله شود، و دو زیر واحد تنظیمی (g و b) (زاها و یانگ، 2012). فعالیت AMPK تا حدی با افزایش نسبت AMP/ATP در حالت های کم انرژی فعال می شود. در طول ایسکمی میوکارد، فعالیت AMPK در میوکارد به عنوان یک پاسخ تطبیقی به استرس کاردیومیوسیت فعال می شود که منجر به یک سری تغییرات در مسیرهای متابولیک می شود. فعال سازی AMPK جذب سلولی گلوکز را با واسطه انتقال ناقل گلوکز 4 (GLUT4) از سیتوزول به غشای سارکولما در ایسکمی در مراحل اولیه سازگاری افزایش می دهد (راسل و همکاران، 2004؛ چی و یانگ، 2015)، و باعث ارتقاء می شود. گلیکولیز از طریق فسفوریلاسیون فسفوفروکتوکیناز 2 (PFK2) (مارسین و همکاران، 2000). AMPK می تواند فعالیت گلیکوژن سنتاز (GS) را که به طور غیرمستقیم استفاده از گلیکوژن را ترویج می کند، مهار کند (Qi and Young، 2015). علاوه بر این، AMPK همچنین نقش مهمی در تعدیل متابولیسم لیپید ایفا می کند. AMPK فعال شده جذب میوکارد اسیدهای چرب را با ترویج جابجایی انتقال دهنده اسید چرب CD36 تسهیل می کند (Luiken et al., 2003). در همین حال، فعالسازی AMPK بیشتر منجر به کاهش سطح مالونیل-CoA از طریق غیرفعالسازی ACC میشود، که به طور موثر اکسیداسیون اسیدهای چرب را با تسکین سرکوب CPT ترویج میکند (Dyck and Lopaschuk، 2006) (شکل 1). در همین حال، فرآیند بیوژنز میتوکندری در یک تعادل پویا حفظ می شود که تحت همجوشی و شکافت دائمی قرار می گیرد. پروتئین 1 مربوط به Dynamin (Drp1) و Fission 1 (Fis1) برای تقویت شکافت میتوکندری شناخته شده است. Mitofusin 1 و 2 (MFN1 و MFN2) عمدتاً واسطه همجوشی غشای خارجی هستند، در حالی که Opa1 عمدتاً مسئول همجوشی غشای داخلی است. عدم تعادل دینامیک میتوکندری منجر به نقص در مورفولوژی میتوکندری و اختلال عملکرد میتوکندری در طول زمینه های ایسکمیک می شود. فعالسازی AMPK ناشی از هیپوکسی میتواند شکافت میتوکندری را از طریق فسفوریلاسیون فاکتور شکافت میتوکندری (MFF)، که به عنوان یک گیرنده غشای خارجی میتوکندری برای Drp1 در نظر گرفته میشود، یک آنزیم ضروری برای ایجاد نیروی محرکه در شکافت میتوکندری، تقویت کند (Garcia and Shaw. ). علاوه بر این، اتوفاژی توسط فعالسازی AMPK تنظیم میشود که عملکرد آسیبدیده میوکارد را از طریق هدف مکانیکی راپامایسین (mTOR) بازیابی میکند (Wu et al., 2020a).
فعال کننده گیرنده گاما فعال شده با تکثیر پراکسی زوم (PPARg) (PGC{1}}a) یک واسطه به خوبی مشخص شده در بیوژنز میتوکندری و دستگاه تنفسی است و فعالیت آن را نیز می توان با فسفوریلاسیون AMPK تعدیل کرد (Gundewar et al., 2009) شکل 2). علاوه بر فسفوریلاسیون AMPK، فعالیت PGC به شدت توسط داستیلاسیون NAD به علاوه دی استیلاز سیرتوئین{7}} (SIRT1) کنترل می شود که بیوژنز میتوکندری را ترویج می کند (Fernandez-Marcos and Auwerx, 2011 and Young; ، 2012؛ هام و راجو، 2016). به عنوان یک کوفاکتور، PGC{13}}a برای کنترل بیان چندین گیرنده هسته ای و فاکتورهای رونویسی شناخته شده است، در نتیجه کل فنوتیپ متابولیک کاردیومیوسیت ها را تنظیم می کند. PGC{14}} بیوژنز میتوکندری و فسفوریلاسیون اکسیداتیو را با فعال کردن مستقیم فاکتورهای تنفسی هستهای (NRF1 و NRF2) و فاکتور رونویسی گیرنده آلفا مرتبط با استروژن (ERRa) تعدیل میکند. NRF1 سنتز پایین دستی فاکتور رونویسی میتوکندری A (MTTF) را فعال می کند، که تکثیر، رونویسی و نگهداری mtDNA را تنظیم می کند (کانگ و هاماساکی، 2005؛ روو و همکاران، 2010). به عنوان یک شریک اصلی رونویسی PGC{21}}a، ERRa میتواند باعث افزایش بیان NRF2، تعدیل چرخه قلب و تمایز، و بیوژنز میتوکندری شود (Ham and Raju, 2016). PGC{24}}همچنین یک PPARa فعال میشود که در متابولیسم اسیدهای چرب در کاردیومیوسیتها نقش دارد (فینک، 2007؛ لیمن و همکاران، 2000). علاوه بر این، یک فعال سازی PGC با افزایش بیان سیتوکروم c، سیتوکروم c اکسیداز زیرواحد II و IV (COX-II و IV)، و سنتاز ATP (چوی و همکاران، 2008؛ Espinoza و همکاران، 2008) تنفس میتوکندری را افزایش می دهد. .، 2010).
اثرات تعدیلی داروهای گیاهی چینی بر متابولیسم انرژی در IHD
متابولیسم انرژی قلبی با توجه به بسترهای انرژی بسیار انعطاف پذیر است، با یک تعادل پویا که با افزایش سن و همچنین زمینه های فیزیولوژیکی و پاتولوژیک اصلاح می شود (هوس و کلی، 2005؛ آروموگام و همکاران، 2016). افزایش بتا اکسیداسیون اسیدهای چرب با افزایش سن با کاهش تدریجی متابولیسم گلیکولیتیک همراه است. قلب جنین از اکسیداسیون گلوکز به عنوان منبع اصلی انرژی استفاده می کند، در حالی که میوکارد بالغ به طور قابل توجهی بیشتر به متابولیسم اسیدهای چرب وابسته است. جالب توجه است که در شرایط ایسکمیک، پروفایل متابولیک قلبی شباهت های قابل توجهی با جنین نشان می دهد. این پدیده به عنوان بازگشت به "فاز جنینی" در نظر گرفته می شود (Tuomainen and Tavi, 2017). علاوه بر تغییرات در استفاده از بستر قلبی، تغییرات در فراساختار و عملکرد میتوکندری نقش مهمی در مکانیسم های IHD ایفا می کند. میتوکندری های قلبی، به عنوان نیروگاه های قلب، شامل یک سری فرآیندهای پیچیده فسفوریلاسیون اکسیداتیو هستند. آنها نه تنها منبع اصلی سنتز ATP و تولید گونههای فعال اکسیژن (ROS) در میوسیتهای قلبی هستند، بلکه نقش مهمی در فرآیند آپوپتوز دارند. هیپوکسی/ایسکمی میوکارد یک سری از فرآیندهای فسفوریلاسیون اکسیداتیو میتوکندری را مهار می کند و پیرووات را به لاکتات منحرف می کند که منجر به اسیدی شدن سلولی می شود. کاردیومیوسیت ایسکمیک توانایی کاهش قابل توجهی برای سنتز ATP، افزایش قابل توجه تولید ROS میتوکندری، هجوم کلسیم، و حتی اضافه بار Ca2 به همراه دارد که منجر به انتقال نفوذپذیری غشای میتوکندری، از دست دادن پتانسیل غشای میتوکندری (MMP) و تورم آزاد شدن میتوکندری می شود. سیتوکروم c. این پدیده ها بیشتر باعث فعال شدن آپوپتوزوم و آپوپتوز با واسطه کاسپاز می شوند (Ham and Raju, 2016). در جریان خونرسانی مجدد، مجموعه ای از اختلالات میتوکندریایی رخ می دهد، از جمله برقراری مجدد سریع فسفوریلاسیون اکسیداتیو، مهار فعالیت زنجیره تنفسی، تجمع ROS میتوکندری، و اضافه بار Ca2، نفوذپذیری غشای میتوکندریایی، منافذ انتقالی منفذ انتقالی نفوذپذیری غشای میتوکندری، وابسته به miPtochondrosis و حتی مرگ سلولی (هام و راجو، 2016؛ وو و همکاران، 2020a).
درمانهای مدرن، مانند ACEI و مسدودکنندههای بتا، علاوه بر اثرات کلاسیک خود، اثرات غیرمستقیم بر متابولیسم قلبی نیز دارند، اما مستقیماً بر متابولیسم انرژی قلبی تأثیر نمیگذارند (Neubauer, 2007). شواهد رو به رشد نشان می دهد که تعدیل متابولیسم قلبی ممکن است رویکرد درمانی امیدوارکننده ای در بیماران مبتلا به IHD باشد (نوردالی و همکاران، 2018؛ دونر و همکاران، 2014؛ هگرمونت و همکاران، 2016). تعدیل کننده های متابولیک شناخته شده مانند تری متازیدین، ال-کارنیتین و کوآنزیم Q10 در حال حاضر در آزمایشات بالینی استفاده می شوند. مکانیسمهای متابولیک این تعدیلکنندهها عمدتاً شامل مهار اکسیداسیون اسیدهای چرب، تحریک اکسیداسیون گلوکز و محافظت از عملکرد میتوکندری میشود (Suner and Cetin، 2016؛ Di Napoli و همکاران، 2007؛ Xue و همکاران، 2007؛ Fotino و همکاران. ، 2013). در TCM، داروهای گیاهی چینی به طور گسترده در درمان بیماری های قلبی عروقی در کلینیک ها استفاده می شود. CHM ها مزایای خاص خود را دارند که به دلیل خواص دارویی چند جزئی، چند هدفی و چند مسیری است. تعداد فزاینده ای از مطالعات نشان داده اند که CHM ها با پر کردن Qi یا Yang و فعال کردن خون یا حل استاز خون می توانند متابولیسم انرژی قلبی را در IHD تنظیم کنند (وانگ و کو، 2013؛ چن و همکاران، 2015؛ ژانگ و همکاران، 2013؛ لی. و همکاران، 2018a).
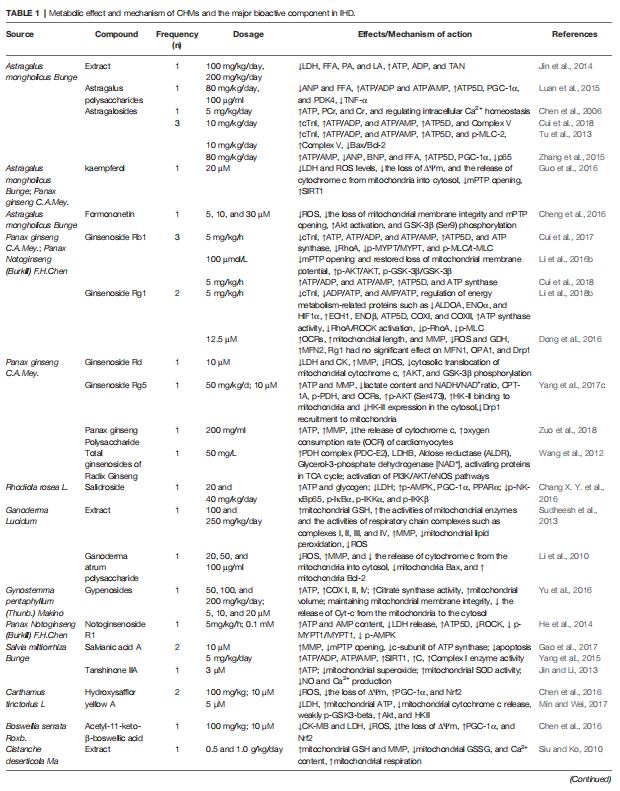
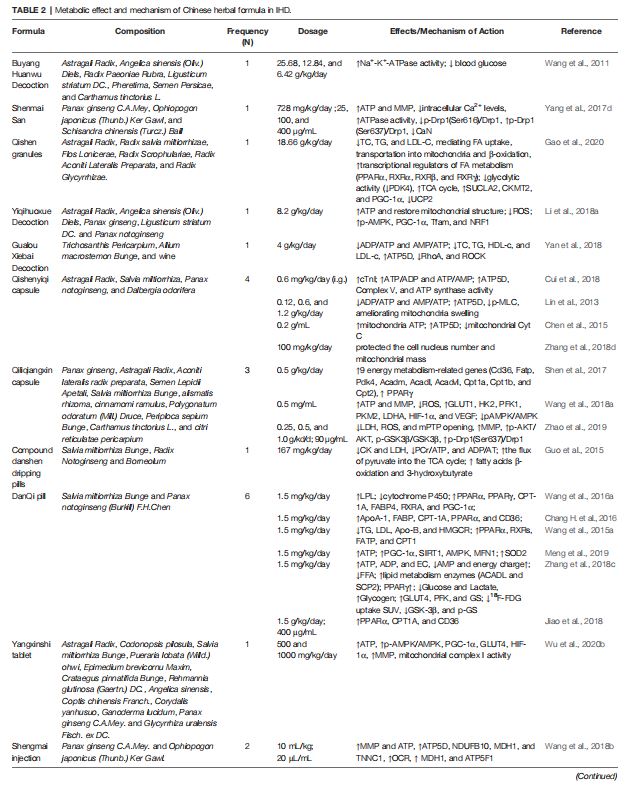
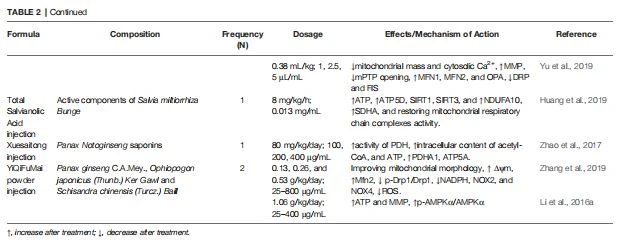
در این مقاله، ما عمدتاً اثرات متابولیکی و مکانیسمهای اساسی داروهای گیاهی چینی، جزء فعال زیستی اصلی CHMs، و فرمولهای گیاهی چینی در IHD را به ترتیب خلاصه میکنیم (جدول 1 و 2). به طور خاص، مدل انفارکتوس حاد میوکارد معمولاً با بستن شریان کرونر نزولی قدامی چپ (LAD) القا میشود که پرکاربردترین مدل حیوانی جراحی است. مدل انفارکتوس میوکارد ناشی از ایزوپروترنول (Iso) یک مدل MI غیر جراحی به خوبی توسعه یافته است (Kumar et al., 2016). بنابراین، معیارهای اصلی ورود شامل مدل MI شامل Iso، مدل MI ناشی از بستن شریان کرونر LAD، و مدل آسیب ایسکمی میوکارد و خونرسانی مجدد (I/R) بود. معیارهای اصلی خروج شامل تمرین ورزشی، تجزیه و تحلیل متابولومیک، مدل HF ناشی از آنژیوتانسین II، مدل HF ناشی از بستن آئورت شکمی، ایسکمی میوکارد ناشی از کلرید کبالت، و آسیب میوکارد ناشی از دوکسوروبیسین بود.

اثرات متابولیک و مکانیسم گیاهان و اجزای اصلی فعال زیستی
نیروبخش و پر کننده Qi
Astragalus mongholicus Bunge (رادیکس Astragali)
Astragalus mongholicus Bunge (Astragalus membranaceus، AM)، همچنین به عنوان Huang-qi در چین شناخته می شود، به عنوان یکی از اصلی ترین داروهای Qi در نظر گرفته می شود. Astragalus mongholicus Bunge که به عنوان یک گیاه درجه یک در "Shen Nong Ben Cao Jing" طبقه بندی شده است، به طور گسترده برای درمان بیماری های قلبی عروقی استفاده می شود (Ma et al., 2013). مطالعات اخیر بر روی اثرات محافظتی قلبی آن، به ویژه آنهایی که مربوط به بهبود متابولیسم انرژی است، متمرکز شده اند. عصاره ریشه آستراگالی (ARE) با اصلاح سطوح FFA، اسید پیروویک (PA) و اسید لاکتیک (LA) در سرم و بافت میوکارد، یک اثر محافظتی قلبی در برابر انفارکتوس میوکارد ناشی از بستن LAD اعمال میکند و در نتیجه انرژی بیشتری تولید میکند (Jin et al. .، 2014). Astragalosides تقریباً از ریشه Astragali استخراج می شود. استراگالوزیدها (5 میلی گرم/کیلوگرم در روز، درون صفاقی) با ایجاد تعادل مجدد Ca2 داخل سلولی به اضافه هموستاز و تنظیم متابولیسم انرژی در آسیب ایسکمیک میوکارد ناشی از ایزو اثرات محافظتی نشان دادند. با این حال، مکانیسم Astragalosides هنوز گزارش نشده است (چن و همکاران، 2006). گزارش شده است که آستراگالوزید IV (AS-IV)، یک جزء فعال زیستی اصلی استراگالوزیدها، باعث بهبود اختلال عملکرد قلبی و تعدیل متابولیسم انرژی در مدل موش MI می شود. مکانیسم متابولیک ممکن است از طریق ارتقاء بیان کمپلکس V و ATP سنتاز دلتا زیرواحد (ATP5D) واسطه شود (Cui et al., 2018). کارآزمایی دیگری نقش متابولیکی AS IV را در ایسکمی میوکارد و آسیب ایسکمی/پرفیوژن مجدد شناسایی کرد. AS-IV همچنین بیان ATP5D و Complex V را افزایش داد (Tu et al., 2013). این نتایج نشان می دهد که AS-IV ممکن است متابولیسم انرژی را از طریق تنفس میتوکندری تنظیم کند. علاوه بر این، AS-IV می تواند بیوسنتز انرژی را تعدیل کند. ژانگ و همکاران (2015) دریافتند که AS-IV همودینامیک قلبی را بهبود میبخشد، بیوسنتز انرژی را واسطه میکند و ATP5D و PGC{21}} را در آسیب قلبی ناشی از ایزو تنظیم میکند. در میوسیتهای بطنی موشهای صحرایی نوزاد (NRVMs)، مکانیسم حفاظتی قلبی AS-IV ممکن است از طریق تنظیم فاکتور هستهای NF-kB/PGC{25} یک سیگنالدهی واسطه شود (ژانگ و همکاران، 2015). گلیکوژن سنتاز کیناز{27}}b (GSK{28}}b)، یک سرین/ترئونین-پروتئین کیناز، با پروتئینهای میتوکندری مانند PI3K-Akt، PGC{32}}a و زیرواحدهای mPTP در تعامل است. که نقش اساسی در ارتباط با بیوژنز میتوکندری، نفوذپذیری میتوکندری و متابولیسم گلیکوژن ایفا می کند (Yang et al., 2017a). Formononetin ترکیب اصلی ایزوفلاونوئید Radix Astragali است. فورمونونتین فسفوریلاسیون GSK{34}b و Akt را در سلولهای H9c2 در طول محرومیت از اکسیژن-گلوکز (OGD) و اکسیژنرسانی مجدد افزایش داد، در نتیجه فعالیت GSK{38}}b را به سمت باز شدن mPTP کاهش داد (چنگ و همکاران، 2016). Kaempferol، یک فلفلاوونوئید طبیعی، در Astragalus mongholicus Bunge و Panax ginseng CAMey وجود دارد. Kaempferol اثرات محافظتی قلبی از طریق مسیر میتوکندری در برابر آسیب ایسکمی / خونرسانی مجدد در NRVMs نشان داد. مکانیسمهای محافظت از قلب ممکن است توسط SIRT1 واسطه شوند (Guo et al., 2015). پلی ساکاریدهای گون (AP) توانایی بهبود بیوسنتز انرژی قلبی و جلوگیری از آسیب ایسکمیک قلبی ناشی از ایزو را با تنظیم فاکتور نکروز تومور TNF-a/PGC{44} یک بیوسنتز انرژی با واسطه سیگنال، هم در داخل بدن و هم در شرایط آزمایشگاهی داشتند. در میان آنها، ATP5D، PGC{47}}a، و پیروات دهیدروژناز کیناز ایزوفرم 4 (PDK4) همگی افزایش یافتند، به این معنی که AP ممکن است با متابولیسم انرژی مرتبط باشد (Luan et al., 2015).
Panax ginseng CAMey (RG)
Panax ginseng CAMey. (Radix ginseng)، همچنین به عنوان Ren Shen شناخته میشود، به دلیل اثر "Qi-Replenishing" در TCM شناخته شده است و به عنوان یک گیاه درجه یک در "Shen Nong Ben Cao Jing" فهرست شده است. در دهه گذشته، ترکیبات فعال رادیکس جینسنگ (شامل جین سنوزید Rb1، Ginsenoside Rd، Ginsenoside Rg1، Ginsenoside Rg5، Panax ginseng Polysaccharide، و جین سنوزید کل) نشان داده شده است که اثرات قابل توجهی بر متابولیسم انرژی دارند. جین سنوزید Rb1 (Rb1)، یک ماده موثر اصلی جینسنگ Panax، نشان داده شده است که متابولیسم انرژی را در ایسکمی میوکارد و آسیب خونرسانی مجدد، هیپرتروفی و حتی HF تعدیل می کند (Zheng et al., 2017). در مدلهای انفارکتوس میوکارد موش، Rb1 میتواند بیان ATP5D میتوکندری و کمپلکس V را افزایش دهد (Cui et al., 2018). در آسیب ایسکمی/خونرسانی مجدد، Rb1 اندازه انفارکتوس را کاهش داد، باز شدن mPTP را مهار کرد، MMP را بازیابی کرد، و بیان p-AKT و p-GSK{14}}b را افزایش داد. این نتایج نشان می دهد که اثرات محافظتی Rb1 در برابر آسیب میوکارد ناشی از I/R ممکن است با محافظت از عملکرد میتوکندری مرتبط باشد (Li et al., 2016b). به طور مشابه، Rb1 می تواند از میوسیت های قلبی محافظت کند و متابولیسم انرژی را در برابر آسیب میوکارد ناشی از I/R از طریق مسیر سیگنالینگ RhoA تعدیل کند (Cui et al., 2017). Ginsenoside Rd (Rd) یکی دیگر از عصاره های فعال بیولوژیکی از Panax ginseng CAMey است. وانگ و همکاران (2013) دریافتند که Rd با تثبیت MMP و کاهش انتشار سیتوکروم c میتوکندریایی در آسیب ایسکمی/پرفیوژن مجدد میوکارد، اثرات محافظتی قلبی را اعمال می کند. به عنوان ترکیب اصلی ریشه جینسنگ، جینسنوزید Rg1 (Rg1) متابولیسم انرژی را در آسیب ایسکمی/خونرسانی مجدد با افزایش محتوای ATP و فعالیت کمپلکس های زنجیره تنفسی میتوکندری تعدیل می کند، که ممکن است تا حدی با اتصال آن به RhoA و در نتیجه مهار RhoA مرتبط باشد. مسیر ROCK (لی و همکاران، 2018b). در شرایط آزمایشگاهی، تیمار Rg1 (12.5 میلیمولار) از طریق تنظیم دینامیک میتوکندری اثر محافظتی قلبی اعمال کرد و با تعدیل اختلال در تنظیم گلوتامات دهیدروژناز (GDH) و MFN2 به دست آمد. با این حال، Rg1 تأثیر معنیداری بر MFN1، OPA1 و Drp1 نداشت (دونگ و همکاران، 2016). میتوکندری هگزوکیناز-II (HK-II)، به عنوان یک مولکول کلیدی در گلیکولیز، توانایی حفظ یکپارچگی میتوکندری و جلوگیری از مرگ میتوکندری را دارد (رابرتس و میاموتو، 2015). جین سنوزید Rg5 (Rg5) آسیب ایسکمیک میوکارد ناشی از ایزو را از طریق مهار اکسیداسیون اسیدهای چرب و تنظیم عدم تعادل پویایی میتوکندری بهبود بخشید. Rg5 ممکن است اختلال عملکرد میتوکندری را از طریق تنظیم اتصال HK II میتوکندری و کاهش جذب Drp1 به میتوکندری از طریق فعال سازی Akt بهبود بخشد (Yang et al., 2017c). Panax ginseng polysaccharide (PGP) دارای اثرات محافظتی قلبی و محافظت از عملکرد میتوکندری در آسیب I/R میوکارد بود. در شرایط آزمایشگاهی، PGP آزادسازی سیتوکروم c میتوکندری را کاهش داد، MMP را حفظ کرد و تنفس میتوکندری را بازسازی کرد (Zuo et al., 2018). جین سنوزیدهای کل (TGS) RG گزارش شده است که متابولیسم انرژی را با افزایش متابولیسم گلوکز و فعال کردن بیان پروتئین مرتبط با چرخه TCA در میوکارد ایسکمیک موش صحرایی افزایش می دهد (وانگ و همکاران، 2012).
رودیولا روزیا ال. (RR)
Rhodiola Rosea L.، یک گیاه شناخته شده در تبت، نشان داده شده است که طیف متنوعی از بیماری های قلبی عروقی، از جمله IHD، آریتمی، و آنژین صدری را درمان می کند (Yu et al., 2014; Liu et al., 2016). سالیدروساید (SAL) جزء اصلی استخراج شده و خالص شده از رودیولا است. چانگ و همکاران (2016) گزارش کرد که SAL با تنظیم متابولیسم انرژی در آسیب میوکارد ناشی از انسداد شریان کرونر دارای اثرات محافظتی قلبی است. SAL محتوای ATP و گلیکوژن را از طریق محورهای AMPK/PGC{5}}و مسیرهای سیگنالینگ AMPK/NF kB افزایش داد (Chang XY و همکاران، 2016).
گانودرما لوسیدوم (GL)
قارچ گانودرما لوسیدوم (قارچ ریشی) که در کشورهای آسیایی به نام لینگژی معروف است، دارای اثرات آنتی اکسیدانی و محافظت کننده از قلب است. عصاره گانودرما لوسیدوم با بهبود اختلال عملکرد میتوکندری در موش های صحرایی انفارکتوس میوکارد ناشی از ایزو، آسیب ایسکمیک میوکارد را بهبود بخشید. این مکانیسم ممکن است مربوط به فعالیت آنزیم های چرخه TCA و مجتمع های زنجیره تنفسی میتوکندری مانند کمپلکس های I، II، III و IV باشد (Sudheesh et al., 2013). پلی ساکارید گانودرما آتروم (PSG{2}}) به عنوان یک ماده فعال زیستی اصلی در گانودرما لوسیدوم در نظر گرفته می شود. لی و همکاران (2010) گزارش داد که PSG{4}} از کاردیومیوسیتها توسط یک مسیر میتوکندریایی در آسیب NRVM ناشی از هیپوکسی/اکسیژناسیون مجدد محافظت میکند. PSG{6}} آزادسازی سیتوکروم c را از میتوکندری به سیتوزول کاهش داد و سطوح MMP را افزایش داد (لی و همکاران، 2010).
Gynostemma pentaphyllum (Thunb.) Makino (GPM)
Gynostemma pentaphyllum (Thunb.) Makino به عنوان یکی از داروهای تقویت کننده Qi، اثرات ضد فشار خون، ضد چربی خون، ضد التهاب و ضد پیری دارد (Zhang et al., 2018a). جیپنوزیدها (GP) ساپونین های اصلی Gynostemma pentaphyllum هستند که دارای اثرات محافظتی قلبی در موش های صحرایی انفارکتوس میوکارد هستند. یو و همکاران (2016) دریافتند که GP به طور قابل توجهی اندازه انفارکتوس میوکارد را کاهش داده و از عملکرد میتوکندری در آسیب ایسکمی-پرفیوژن مجدد میوکارد محافظت می کند. GP سطوح ATP را افزایش داد، فعالیت های آنزیمی زنجیره تنفسی میتوکندری را تنظیم کرد و یکپارچگی غشای میتوکندری را حفظ کرد (Yu et al., 2016).


