انتقال ویروس تب خوکی کلاسیک در خوکچههای همزمان با وضعیتهای مختلف ایمنی بدنبال واکسن زنده ضعیف شده
Nov 28, 2023
خلاصه ساده:
تب کلاسیک خوکی یک پاتوژن بسیار خطرناک است که خوک های اهلی را تحت تأثیر قرار می دهد. واکسیناسیون با واکسن زنده اصلاح شده برای پیشگیری و کنترل تب کلاسیک خوکی حیاتی است. با این حال، بسیاری از عوامل، مانند آنتیبادیهای مشتق شده از مادر از طریق آغوز، میتوانند با اثربخشی واکسن زنده تداخل داشته باشند که منجر به محافظت ناقص در گلههای تجاری میشود. در این مطالعه، انتقال ویروس تب کلاسیک خوکی در خوکهای آزمایشی با وضعیتهای مختلف ایمنی پس از واکسیناسیون بررسی شد. یک خوکک بدون پاتوژن خاص آلوده به ویروس تب خوکی کلاسیک به عنوان اهداکننده ویروس و مهاجم اولیه عمل کرد و با خوکهایی با آنتیبادیهای مشتق شده از مادر که واکسینه شده بودند یا نشده بودند زندگی کرد. با توجه به نتایج، اکثر خوکهایی با آنتیبادیهای مشتق شده از مادر که واکسینه شده بودند، کاملاً از انتقال تماسی از اهداکننده ویروس محافظت میشدند و انتقال ویروس به شخص ثالث را مسدود میکردند. ایمنی سلولی، که توسط سلولهای ترشحکننده اینترفرون مشخص میشود، به عنوان کلید پاکسازی و بازیابی ویروسی عمل میکند. برعکس، خوکهای واکسینه نشده با سطوح پایین آنتیبادیهای مشتق شده از مادر، عفونت ویروس تب خوکی کلاسیک را به دنبال تهاجم ویروسی تسریع کرده بودند. در نتیجه، واکسیناسیون هنوز هم ایمنی جامد را در گله های تجاری تحت تداخل آنتی بادی مشتق شده از مادر ایجاد می کند و می تواند انتقال ویروس را در گله مسدود کند.

گیاه سیستانچ سیستم ایمنی را افزایش می دهد
خلاصه:
تب خوکی کلاسیک (CSF) یک بیماری هموراژیک سیستمیک است که خوکهای اهلی و گرازهای وحشی را تحت تأثیر قرار میدهد. واکسن زنده اصلاح شده (MLV) محافظت سریع و محکم در برابر عفونت ویروس CSF (CSFV) ایجاد می کند. آنتی بادی های مشتق شده از مادر (MDAs) از طریق آغوز می توانند با کارایی MLV تداخل داشته باشند و منجر به محافظت ناقص در برابر عفونت CSFV در خوک ها شود. این مطالعه انتقال CSFV را در میان خوکهای آزمایشی با وضعیتهای مختلف ایمنی پس از MLV بررسی کرد. 19 خوک، 18 با MDA و 1 خوک بدون پاتوژن خاص آلوده به CSFV که به عنوان اهدا کننده CSFV خدمت می کرد، با خوک هایی که MLV را تجویز کرده بودند یا نکرده بودند، زندگی مشترک داشتند. پنج ششم از خوکهای مبتلا به MDA که یک دوز MLV دریافت کرده بودند، کاملاً از انتقال تماسی از اهداکننده CSFV محافظت میشدند و CSFV را به خوکهایی که بهطور ثانویه از طریق زندگی مشترک در معرض قرار میگرفتند، منتقل نمیکردند. ایمنی با واسطه سلولی، که توسط سلولهای ترشح کننده اینترفرون{9} اختصاصی ضد CSFV نشان داده میشود، کلید پاکسازی و بازیابی ویروس بود. پس از زندگی مشترک با اهداکننده CSFV، خوکهای واکسینه نشده با سطوح MDA پایین، عفونت CSFV را نشان دادند و CSFV را از طریق تماس به سایر خوکها گسترش دادند. کسانی که سطح MDA بالایی داشتند بهبود یافتند اما به عنوان ناقلان بدون علامت عمل کردند. در نتیجه، MLV هنوز هم ایمنی جامد را در گله های تجاری تحت تداخل MDA ایجاد می کند و انتقال CSFV را در این گله ها مسدود می کند.
کلید واژه ها:
تب کلاسیک خوکی؛ واکسن زنده اصلاح شده؛ آنتی بادی مشتق از مادر؛ انتقال
1. معرفی
تب خوکی کلاسیک (CSF) یک بیماری هموراژیک فرامرزی، بسیار مسری است که خوکهای اهلی و گرازهای وحشی را تحت تاثیر قرار میدهد و توسط ویروس تب کلاسیک خوکی (CSFV) ایجاد میشود [1،2]. CSF یک بیماری قابل اطلاع توسط سازمان جهانی بهداشت حیوانات (WOAH) است و CSF هنوز یک بیماری بومی در آسیا، آمریکای جنوبی، آمریکای مرکزی و کارائیب است. فقط کشورهای آمریکای شمالی، اقیانوسی و اروپای غربی با موفقیت CSF را ریشه کن کرده اند [3-6].
CSFV یک ویروس RNA تک سویه پوششی استویروس پستیجنس از خانواده Flaviviridae که همچنین شامل ویروس اسهال ویروسی گاوی و ویروس بیماری مرزی است [1،2]. ژنوم ویروسی حاوی تقریباً 12.3 کیلوبایت است و 3898 اسید آمینه پلی پروتئین را کد می کند که بعداً به چهار ساختاری (C، Erns، E1 و E2) و هشت غیرساختاری (Npro، p7، NS2، NS3، NS4A، NS4B، NS5A، پردازش می شوند. و NS5B) پروتئین ها توسط پروتئازهای ویروسی و سلولی [7]. بر اساس توالی های E2 یا NS5B، CSFV به سه ژنوتیپ با سه یا چهار زیرگروه طبقه بندی می شود (1.1، 1.2، 1.3؛ 2.1، 2.2، 2.3؛ 3.1، 3.2، 3.3، 3.4) [8]. بسته به حدت CSFV و عوامل خوک، از جمله سن، نژاد، وضعیت سلامتی و وضعیت ایمنی، خوک های آلوده به CSFV می توانند علائم بالینی حاد، تحت حاد یا مزمن را نشان دهند [9-11]. خوکهای آلوده به CSFV با حدت بالا تب حاد و ضایعات هموراژیک شدید را نشان میدهند و بارهای ویروسی بالایی را در مدفوع، بزاق و ترشحات خود در طول روزهای کوتاه زندهمانی خود دفع میکنند. در مقابل، خوکهای آلوده به CSFV با حدت متوسط و کم حدت علائم بالینی تحت حاد و مزمن و ضایعات خفیفتر را نشان میدهند و سطوح متوسط تا پایین CSFV را در مدفوع، بزاق و ترشحات خود طی روزهای نسبتاً طولانیتری از بقای خود دفع میکنند [12،13]. ]. در این زمینه، خوک های آلوده در درجه اول می توانند نقش برجسته ای در انتقال ثانویه CSFV به خوک های دیگر با ایمنی متغیر نسبت به CSFV داشته باشند. قابلیت انتقال CSFV با حدت متوسط و با حدت بالا بیشتر از CSFV کم حدت است [12،13].
واکسیناسیون برای پیشگیری و کنترل CSF در کشورهای آندمیک ضروری است. واکسن زنده اصلاح شده (MLV) یک واکسن با کارایی بالا، ایمن و مقرون به صرفه است که بیشترین استفاده را در بین گله های تجاری دارد. MLV می تواند به سرعت ایمنی را برای ایجاد محافظت نسبی در 3 روز پس از واکسیناسیون و محافظت کامل در 5 روز پس از واکسیناسیون ایجاد کند [14-16]. با این حال، بسیاری از عوامل، از جمله وضعیت سلامت خوکهای با کیفیت واکسن، و سطح آنتیبادیهای مشتق شده از مادر (MDAs)، میتوانند اثربخشی MLV را کاهش دهند که منجر به محافظت ناقص از خوکهای واکسینه شده میشود [14-16]. در گله های بومی CSF، زمان واکسیناسیون MLV به سطح MDA خوک ها بستگی دارد. سطوح بالای MDA با کارایی MLV تداخل دارد و سطوح پایین MDA خطر عفونت خوکها را افزایش میدهد [17،18]. بنابراین، فرمولبندی برنامههای واکسیناسیون MLV در گلهها باید بر اساس کاهش سطح MDA باشد. یک برنامه واکسیناسیون منظم علیه CSF در تایوان شامل واکسیناسیون خروس های باردار برای ارائه MDA از طریق آغوز به نوزادان و سپس تجویز اولین دوز MLV به خوکچه ها در سن 3 تا 12 هفتگی است. با توجه به نظارت در تایوان، میانگین تیتر آنتی بادی های خنثی کننده ضد CSFV (NAs) MDA در خوکچه ها در زمان اولین واکسیناسیون MLV آنها بالاتر از 1:32 است [19]، که می تواند کارایی MLV را مختل کند و منجر به انواع مختلف شود. وضعیت ایمنی در گله ها این مطالعه یک آزمایش حیوانی را برای بررسی توانایی MLV برای محافظت از خوکچههایی با سطوح مختلف MDA پس از زندگی مشترک با یک خوکچه آلوده به CSFV که به عنوان اهداکننده CSFV عمل میکرد (یعنی 'مهاجم اولیه') توصیف میکند.
2. مواد و روشها
2.1. سلول ها و ویروس ها
سلولهای -1-کلیه آزاد خوک از نوع سیرکوویروس خوک-15 (PK{4}}) در حداقل محیط ضروری (Thermo Fisher Scientific, Carlsbad, CA, USA) با 5% سرم جنین گاوی کشت داده شدند. (FBS) و در دمای 37 ◦C در 5% CO2 انکوبه شد. سلولهای PK{9}} از تکثیر CSFV پشتیبانی کردند، از جمله سویه واکسن لاپینیزه فیلیپین Coronel (LPC) ژنوتیپ 1.1 و سویه TD/96 ژنوتیپ 2.1. تیتر ویروس سویه های LPC و TD/96 به ترتیب 107.71 و 105.87 دوز عفونی کشت بافت 50 درصد (TCID50) بود.
2.2. طراحی تجربی
مجموعاً {0}}خوکهای یک هفتهای شامل 1 خوکچه بدون پاتوژن خاص (SPF) بدون NAs ضد CSFV (گروه 1) و 18 بچه خوک سالم (گروههای 2-5) از LPC واکسینه شده خروس های یک گله بدون CSFV (شکل 1) در آزمایش استفاده شد. 18 خوکچه سالم به طور تصادفی به چهار گروه (گروه 2-5) تقسیم شدند. میانگین تیتر ضد LPC NA (log2) در بین گروههای 2-5 به ترتیب برابر 2.2 ± 3.7، 2.3 ± 3.7، 2.2 ± 4.3 و log2 1.3 ± 4.3 برابر بود و در {53} روزهای پس از آزمایش (DPE). خوکچه SPF (گروه 1) با استفاده از سویه 5 × 10⁵ TCID50 TD/96 در 7 DPE تلقیح شد و به عنوان مهاجم اولیه یا اهداکننده CSFV هنگام زندگی مشترک در اتاق 12 با گروه های 2 و 3 (شکل 1) عمل کرد. برای آزمایش اینکه آیا MDAها اثربخشی MLV را کاهش میدهند، گروه 2 (n=6) با یک دوز واحد از واکسن LPC (بیش از 1 × 10⁴ TCID50/دوز) در 0 DPE واکسینه شدند. برای آزمایش توانایی محافظت از MDA، گروه 3 (کنترل گروه 2؛ n=3) با واکسن LPC واکسینه نشد و بنابراین این خوکها پس از اولین تماس با مهاجم اولیه، پوسیدگی MDA را پس از 7 روز از خود نشان دادند. گروه 1 (مهاجم اولیه) با گروه های 2 و 3 به مدت 10 روز (از 7 تا 17 DPE) زندگی مشترک داشتند. گروه 2 سپس به اتاق 2 منتقل شد تا به عنوان مهاجمان ثانویه از طریق زندگی مشترک با گروه 4 (n=6) از 17 تا 36 DPE خدمت کند. گروه 3 برای زندگی مشترک با گروه 5 (n=3) به اتاق 4 منتقل شد. بنابراین گروه 4 و 5 خوکچه هایی با 17 روز پوسیدگی MDA پس از اولین تماس با مهاجمان ثانویه بودند. کمیته مراقبت و استفاده از حیوانات موسسه تحقیقات بهداشت حیوانات این آزمایش حیوانی را تایید کرد (شماره تاییدیه A09007).

شکل 1. طراحی آزمایشی.
حیوانات روزانه از نظر علائم بالینی تحت نظر قرار گرفتند و طبق روش میتلهولزر [19]، هر پارامتر از 0 تا 3 نمره گذاری شد که نشان دهنده طبیعی تا شدید بود. دمای رکتوم اندازه گیری شد و نمونه های خون، بزاق و مدفوع دو بار در هفته تا 35 DPE جمع آوری شد. نمونه ها برای بارهای CSFV و آنتی بادی های ضد CSFV مورد تجزیه و تحلیل قرار گرفتند. کالبدگشایی در 18 DPE برای گروه 1، در 36 DPE برای گروه های 2 و 3، و در 39 DPE برای گروه های 4 و 5 انجام شد. و چشمه نوشیدن) نیز برای CSFV مورد تجزیه و تحلیل قرار گرفتند.
2.3. واکنش زنجیره ای پلیمراز در زمان واقعی رونویسی معکوس کمی (QRRT-PCR) CSFV
RNA های ویروسی نمونه ها توسط کیت مینی RNA ویروسی QIAamp® (QIAGEN، هیلدن، آلمان) استخراج شد و از طریق واکنش زنجیره ای پلیمراز رونویسی معکوس کمی (QRRT-PCR) [20] شناسایی شد. QRRT-PCR برای شناسایی ژنوتیپ های مختلف و سنجش کمی بارهای CSFV نمونه ها استفاده شد.

فواید سیستانچ برای مردان - تقویت سیستم ایمنی بدن
برای مشاهده محصولات Cistanche Enhance Immunity اینجا را کلیک کنید
【بیشتر بخواهید】 ایمیل:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
2.4. NAهای ضد CSFV
حرارت دادن سرم خوکها به مکمل غیرفعال شده در دمای 56 درجه سانتیگراد، تشخیص NAهای ضد LPC و TD/96 را امکانپذیر کرد. به طور خلاصه، 2-نمونههای سرم رقیقشده بهصورت سری، که از 1:4 شروع میشد، با حجمهای مساوی 100 TCID50 سویه LPC یا TD/96 مخلوط شدند. مخلوطها در دمای 37 درجه سانتیگراد به مدت 1 ساعت انکوبه شدند و متعاقباً به سلولهای PK{11}} در صفحات چاهک منتقل شدند. پس از انکوباسیون به مدت 3 روز، سلول ها ثابت و رنگ آمیزی شدند تا حضور آنتی ژن CSFV از طریق سنجش فلورسانس غیرمستقیم مشخص شود. تیتر خنثی کننده آنتی بادی log2 ضریب رقت آنتی بادی (رقت متقابل) زمانی است که 50 درصد چاهک ها از عفونت محافظت می شوند.
2.5. اینترفرون خاص CSFV (IFN)- -ترشح سلولها
برای ارزیابی ایمنی سلولی ضد CSFV (CMI) خوکها، آزمایش پاسخ IFN اختصاصی CSFV از سلولهای تک هستهای خون محیطی (PBMCs) انجام شد. PBMC ها از خون ضد انعقاد EDTA با استفاده از هیستوپاک{6}} (سیگما-آلدریچ، سنت لوئیس، MO، ایالات متحده آمریکا) در 4{13}}{26}}× گرم سانتریفیوژ شدند. PBMC ها در محیط RPMI 1640 (Thermo Fisher Scientific, Carlsbad, CA, USA) حاوی 10% (vol/vol) FBS غیرفعال شده با حرارت، 100 واحد در میلی لیتر پنی سیلین G، 100 میکروگرم بر میلی لیتر استرپتومایسین و 0.25 میکروگرم استرپتومایسین معلق شدند. میلیلیتر آمفوتریسین B. تعداد PBMCهای ترشحکننده IFN اختصاصی CSFV از طریق روش ELISPOT آنزیمی تک رنگ IFN خوک (CTL، Shaker Heights، OH، USA) شناسایی شد. در پلیتهای چاهک، PBMCs در 5 × 10⁶ سلول در میلیلیتر در 100 میکرولیتر در هر چاه با آنتیبادی جذب IFN خوک به گروه ساختگی (تلقیح شده با محیط RPMI 1640)، گروه TD/96 (آلوده به 0.1 MOI)، و گروه ConA (مکمل با 5 میکروگرم در میلی لیتر کانکاناوالین A؛ سیگما-آلدریچ، سنت لوئیس، MO، ایالات متحده)، به عنوان کنترل مثبت. هر بار از تحریکات دوبلکس استفاده شد. پس از 48 ساعت تحریک، چاهک ها شسته شدند، آنتی بادی شناسایی شده IFN متصل شد و بستر کشت شد. لکه های موجود در هر چاهک غربالگری و با استفاده از آنالایزر CTL مورد سنجش قرار گرفتند.
2.6. ایمونوهیستوشیمی
بافتهای لنفوئیدی از طریق روش ایمونوهیستوشیمی با استفاده از سیستم تشخیص HRP IHC پلیمری فوق حساس (BioGenex، لاهه، هلند) و آنتیبادی مونوکلونال 1C7A1 در برابر سویههای CSFV ژنوتیپ 2.1 مورد بررسی قرار گرفتند [21]. ایجاد رنگ قهوه ای نشان دهنده وجود CSFV است.
2.7. آمار
برای تعیین تفاوت های آماری معنی دار بین گروه ها از آنالیز واریانس و آزمون چند دامنه ای دانکن استفاده شد. تجزیه و تحلیل داده ها با استفاده از SAS (SAS Institute، Cary، NC، USA) انجام شد. مقدار p کمتر از 0.05 معنیدار آماری را نشان میدهد.
3. نتایج
3.1. علائم بالینی
همه خوکها قبل از آزمایش سالم بودند (جدول 1). خوکچه گروه 1 اهداکننده CSFV (مهاجم اولیه) بود و با سویه TD/96 تلقیح شد. تب و علائم بالینی مرتبط با CSFV در گروه 1 به ترتیب در 12 DPE و 13 DPE، با افزایش مداوم نمرات از 13-18 DPE که با نمره 20 در 18 DPE به اوج خود رسید، شناسایی شد. برای خوکهای گروه 2 و 3 که با اهداکننده CSFV زندگی میکردند، گروه 2 که شامل خوکهایی با MDA بود که با واکسن LPC واکسینه شده بودند، سالم بودند و تب یا علائم بالینی مرتبط با CSFV را در طول آزمایش نشان ندادند. . با این حال، آنهایی که در گروه 3 بودند، که شامل خوکهای دارای MDA بودند که تحت واکسیناسیون LPC قرار نگرفته بودند، تب را در 23 DPE (16 روز پس از اولین تماس، DP1C) نشان دادند و تعداد خوکهای تب دار از 23-36 DPE افزایش یافت. تب با علائم بالینی مرتبط با CSFV که در 24 DPE (17 DP1C) آشکار میشد، مرتبط بود. اگرچه یک بچه خوک (8138) علائم بالینی خفیفی را نشان داد (نمرات زیر 5)، دو بچه خوک دیگر از نظر بالینی از 24 تا 36 DPE بدتر شدند، با امتیازات آنها بین 12 تا 16. خوکک 8136 از گروه 3 در 29 DPE مرد. خوکهای گروه 4 که در تماس (زندگی مشترک) با گروه 2 بودند نیز سالم بودند و در طول دوره آزمایشی تب یا علائم بالینی مرتبط با CSFV نداشتند. خوکهای گروه 5 که با گروه 3 در تماس بودند تب در 27 DPE (10 روز پس از تماس دوم، DP2C) و علائم بالینی مرتبط با CSFV در 30 DPE (13 DP2C) نشان دادند. تعداد خوکچه های تب دار و نمرات بالینی در گروه 5 در طول زمان افزایش یافت. امتیاز 39 DPE 1.4 ± 21 بود که بین 19 تا 22 متغیر بود.
جدول 1. درصد خوکچه های تب دار در هر گروه در طول دوره آزمایش.
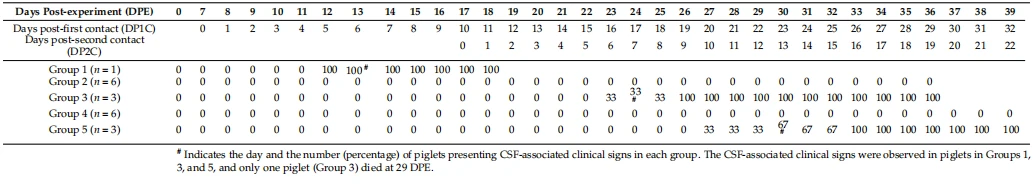
با توجه به پارامترهای بالینی، تنها حضور MDA ها (گروه 3) نمی تواند از خوک ها در برابر انتقال تماس ناشی از مهاجم اولیه (گروه 1) محافظت کند. یک دوز واحد از واکسن LPC علاوه بر MDAها (گروه 2؛ به عنوان مثال، روشی که به طور گسترده اعمال می شود) محافظت در برابر انتقال تماسی ناشی از مهاجم اولیه را ارائه می دهد (گروه 1؛ جدول 1). عمل واکسیناسیون به طور گسترده به کار گرفته شد همچنین برای خوکچههای مورد حمله ثانویه (یعنی گروه 4 که فقط دارای MDA بودند اما تب و علائم بالینی نداشتند) سودمند بود. از نظر بالینی، وضعیت در گروه 5 (گوشتک ها با انتقال تماس ناشی از مهاجمان ثانویه) وضعیت را در گروه 3 (انتقال تماس ناشی از مهاجم اولیه) خلاصه کرد.
3.2. CSFV ویرمی
سویه CSFV TD/96 در خون هیچ یک از خوکها قبل از آزمایش شناسایی نشد (شکلهای 2A و 3A). پس از تلقیح TD/96، ویرمی TD/96 در خوکچه گروه 1 برای اولین بار در 10 DPE (3 روز پس از تلقیح، POI) شناسایی شد و تا 17 DPE به طور مداوم شناسایی شد. بارهای CSFV از 101.2 TCID50/mL در 10 DPE به 106.4 TCID50/mL در 17 DPE افزایش یافت. در گروه 2، شامل خوکهایی با واکسیناسیون LPC که با مهاجم اولیه زندگی مشترک داشتند، ویرمی TD/96 تنها در یک خوک (8134) از 21 تا 35 DPE شناسایی شد. بارهای CSFV در خون Piglet 8134 به اوج خود رسید (104.9 TCID50/mL) در 24 DPE و متعاقباً به 101.7 TCID50/mL در 35 DPE کاهش یافت. در گروه 3، شامل خوکهای بدون واکسیناسیون LPC که با مهاجم اولیه زندگی مشترک داشتند، ویرمی TD/96 برای اولین بار در 66.7٪ (2/3) از خوکها در 21 DPE (14 DP1C) شناسایی شد و همه آنها در 24 مورد مثبت بودند. DPE با این حال، Piglet 8138 برای ویرمی TD/96 از 28-35 DPI منفی بود (شکل 2A). در گروه 4، متشکل از خوکهایی که با گروه 2 در اتاق 2 زندگی مشترک داشتند، ویرمی TD/96 در طول دوره آزمایشی تشخیص داده نشد. همه خوکهای گروه 5، که شامل خوکهایی بودند که با گروه 3 در تماس بودند، از نظر ویرمی TD/96 از 31-35 DPE مثبت بودند. بارهای CSFV بین 105.1 و 106.7 TCID50/mL در 35 DPE بود (شکل 3A). در گروههای 2 و 3، حضور MDAs اولین تشخیص ویرمی را تا 10 DP1C به تاخیر انداخت (یعنی خوکها تا 17 DPE بدون علامت ماندند؛ جدول 1) با مهاجم اولیه، در مقایسه با روز 3 POI در گروه 1 در حاد. فاز. تک دوز اضافی واکسن LPC (گروه 2) درصد خوک های ویروسی را تا 83 درصد کاهش داد (شکل 2A). به طور مشابه، تک دوز اضافی واکسن LPC بارهای ویروسی در خون را از 28-35 DPE کاهش داد (شکل 3A). واکسیناسیون LPC گروه 2 همچنین برای خوکچه های گروه 4 که متعاقباً با آنها زندگی مشترک کردند (به طور ثانویه مورد تهاجم قرار گرفتند) سودمند بود، علیرغم اینکه یکی از خوک های گروه 2 دارای ویرمی گذرا (شکل 2A) و بزاق (شکل 2B) و دفع مدفوع (شکل 2C) TD بود. /96. این تغییر در وضعیت ویروسی با تغییرات تعیین شده بر اساس پارامترهای بالینی (بخش 3.2) مرتبط بود، اگرچه تشخیص آزمایشگاهی حساس تر بود.
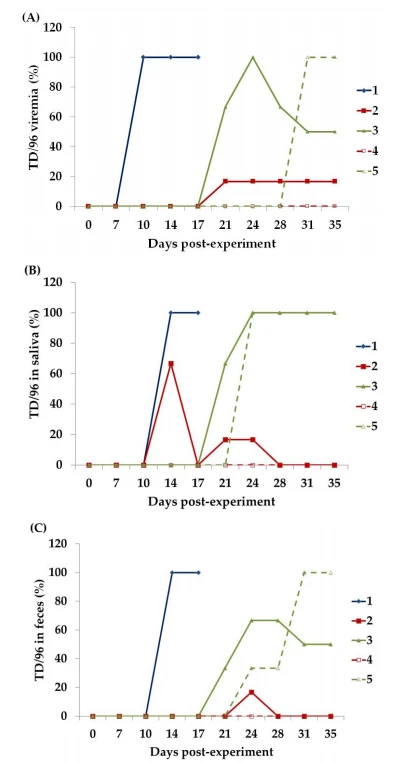
شکل 2. تعداد (درصد) خوکچههای مثبت TD/96 که از طریق QRT-PCR [2{10}}] خون (A)، بزاق و (C) مدفوع خوکها در هر کدام شناسایی شد. گروه در طول دوره آزمایشی خوکچه گروه 1 به طور طعنه آمیزی با TD/96 در 7 DPE تلقیح شد و به عنوان دهنده CSFV (یعنی مهاجم اولیه) برای گروه های 2 و 3 عمل کرد. واکسیناسیون LPC با خوک 1 گروه 1 از 7-17 DPE انجام نمی شود. خوکچه ها در گروه های 4 و 5 به ترتیب از 17-36 DPE با گروه های 2 و 3 (یعنی مهاجمان ثانویه) زندگی مشترک داشتند.

شکل 3. بارهای CSFV در خون (A)، (B) بزاق و (C) مدفوع خوکچههای هر گروه وجود دارد.
3.3. ریزش CSFV در بزاق
سویه CSFV TD/96 در بزاق هیچ یک از خوکها قبل از آزمایش شناسایی نشد (شکلهای 2B و 3B). بزاق خوکچه گروه 1 ابتدا برای TD/96 در 14 DPE (7 DP1C) مثبت بود که تا 17 DPE ادامه یافت. بارهای CSFV از 105.8 TCID50/mL در 14 DPE به 107.6 TCID50/mL در 17 DPE افزایش یافت. قابل ذکر است، در خوکهای گروه 2 که با LPC واکسینه شده بودند و با اهداکننده CSFV زندگی مشترک داشتند، TD/96 برای اولین بار در 66.7٪ (4/6) از نمونههای بزاق در 14 DPE (7 DP1C) شناسایی شد که منفی شد. بعد از آن. بعداً، یک خوکچه دیگر (1/6، Piglet 8134 با ویرمی TD/96؛ شکل 2A)، TD/96 را در بزاق خود از 21-24 DPE در 101.2 و 102.7 TCID50/mL، که سطح پایین تری از خوکچه های فوق الذکر است، در بزاق خود دفع کرد. . در گروه 3 با خوکهایی که فقط با MDA و بدون واکسیناسیون LPC که با اهداکننده CSFV زندگی مشترک داشتند، TD/96 در ابتدا در 66.7 درصد (2/3) از نمونههای بزاق در 21 DPE شناسایی شد و همه نمونههای بزاق با مثبت بودند. 24 DPE. در گروه 4 شامل خوکهایی که با گروه 2 زندگی مشترک داشتند، TD/96 در نمونههای بزاق در طول آزمایش تشخیص داده نشد، در حالی که در گروه 5، شامل خوکهایی که با گروه 3 زندگی مشترک داشتند، همه نمونههای بزاق مثبت بودند. TD/96 از 24-35 DPE. بارهای CSFV در طول زمان افزایش یافت و از 105.9 تا 107.3 TCID50/mL توسط 35 DPE متغیر بود. در مجموع چهار ششم از خوکچههای گروه 2 (با واکسیناسیون LPC تک دوز) بزاق TD/{64} مثبت در 14 DPE قبل از ویرمی داشتند. CSFV زودتر در خوکچه های گروه 2 که در طی ریزش TD/96 با خوکچه گروه 1 در تماس بودند، شناسایی شد. یک بچه خوک (Piglet 8134) در گروه 2 بعداً ریزش گذرا از 21-24 DPE را نشان داد که به احتمال زیاد نماینده تکثیر CSFV در غدد بزاقی پس از ویرمی است. با توجه به مقایسه بین گروه های 2 و 3، واکسیناسیون LPC باعث کاهش ریزش CSFV شد.
3.4. ریزش CSFV در مدفوع
سویه CSFV TD/96 در مدفوع هیچ یک از خوکها قبل از آزمایش شناسایی نشد (شکل 2C و 3C). مدفوع خوکچه گروه 1 ابتدا در 14 DPE (7 DPIC) TD/96 مثبت بود که تا 17 DPE ادامه یافت. بارهای CSFV از 105.1 TCID50/g در 14 DPE به 108.8 TCID50/mL در 17 DPE افزایش یافت. در گروه 2، شامل خوکهایی با واکسیناسیون LPC که با اهداکننده CSFV گروه 1 زندگی مشترک داشتند، تنها خوکک 8134 به طور موقت در 24 DPE (17 DPIC) ریخته شد، در حالی که همه خوکهای دیگر در گروه 2 منفی بودند. در گروه 3، شامل خوکهای بدون واکسیناسیون LPC که با اهداکننده CSFV زندگی میکردند، دو سوم خوکها (همه به جز Piglet 8138) بین 21 (14 DP1C) تا 35 DPE مثبت بودند، در این مدت بارهای CSFV از 105 افزایش یافت. TCID50/g در 21 DPE تا 107.5 TCID50/mL در 31 DPE. با این حال، نمونه مدفوع Piglet 8138 با ویرمی گذرا TD/96 برای TD/96 مثبت نبود. در گروه 4، متشکل از خوکچه هایی که با گروه 2 زندگی مشترک داشتند، تمام نمونه های مدفوع برای TD/96 در طول دوره آزمایش منفی بود. در گروه 5، که شامل خوکهایی بود که با گروه 3 زندگی میکردند، تعداد نمونههای مدفوع مثبت در طول زمان از 24 تا 35 DPE افزایش یافت، و بارها از 105.7 تا 107.2 TCID50/g در 35 DPE افزایش یافت. . در گروه 5، اولین تشخیص در 24 DPE (7 DP2C) رخ داد، که مشابه با گروه 1 (14 DPE) بود، و نمایه کلی به موازات ویرمی (شکل 2A)، نشان میدهد که CSFV به دنبال ویرمی به صورت موضعی تکثیر میشود. . همانطور که در بخش های 3.3 و 3.4 توضیح داده شد، مدفوع و بزاق وسایل اولیه انتقال تماس CSFV بودند.
cistanche tubulosa - بهبود سیستم ایمنی
3.5. بارهای CSFV در بافت ها که از طریق کالبدگشایی به دست می آیند
بافت خوکچه اهداکننده CSFV گروه 1 و خوکچه های گروه 3 و 5 که با آنها زندگی مشترک داشتند TD/96 مثبت بودند (جدول 2). بارهای TD/96 در بافت های خوکچه گروه 1 بین 1{18}}3.76 و 109.37 TCID50/g متغیر بود. در گروه 5، شامل خوکهایی که با گروه 3 در تماس بودند، TD/96 در همه خوکها تشخیص داده شد و در تمام بافتها توزیع شد، با بارهای بالاتر در اندامهای هماتولنفوئید (لوزهها، غدد لنفاوی، و طحال) و آن اندامها. با منبع خون فراوان تر (کبد، ریه ها، قلب و کلیه ها)، همانطور که در شکل 2A، C ارائه شده است. بالاترین بارهای TD/96 در بافت های لنفاوی بود (بیش از 109.0 TCID50/g). در مقابل، بافتهای غیرهماتولنفوئیدی از خوکهای همزیست گروههای 2 و 4، بهجز خوکچه 8134 از گروه 2، که دارای ویرمی گذرا TD/96 بود، سطح پایین TD/96 فقط در خون، لوزهها، غدد لنفاوی اینگوینال مثبت بود. و غدد لنفاوی زیر ماگزیلاری، با این سطوح بین 101.65 و 103.78 TCID50/g. در گروه 3، شامل خوکهای بدون واکسیناسیون LPC که با اهداکننده CSFV گروه 1 در تماس بودند، TD/96 در تمام بافتهای دو تا از سه خوک (به جز Piglet 8138) شناسایی شد. خوکچه 8138 از گروه 3 که دارای ویرمی گذرا TD/96 بود، دارای TD/96 در لوزه ها، غدد لنفاوی زیر فکی و غدد لنفاوی برونش بود، اگرچه بارهای ویروسی کمتر از حد متوسط بود و بین 103.08 و 104.69/mLID.5 متغیر بود.
جدول 2. بارهای CSFV شناسایی شده در بافت های مختلف خوک ها از طریق CSFV QRTT-PCR

3.6. CSFV در محیط تجربی
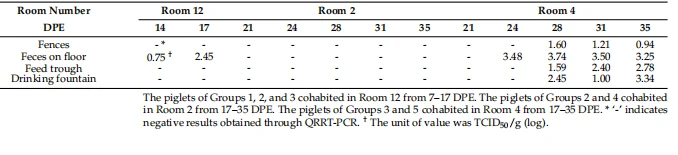
حصار، مدفوع روی زمین، آبخوری و آبخوری هر اتاق آزمایشی برای TD/96 از طریق QRRT-PCR آزمایش شدند (جدول 3). TD/96 در 14 و 17 DPE در مدفوع کف اتاق 12 شناسایی شد، که در آن اهداکننده CSFV گروه 1 با خوکهای گروه 2 و 3 زندگی مشترک داشت. نمونههای اتاق 2 که در آن گروههای 2 و 4 با هم زندگی میکردند همگی از 21 تا 35 DPE منفی بودند. TD/96 برای اولین بار در مدفوع کف اتاق 4 (گروه های 3 و 5) در 24 DPE شناسایی شد. متعاقباً، TD/96 بر روی حصار، حفره خوراک، و چشمه آبخوری اتاق 4 از 28-35 DPE شناسایی شد. این نتایج نشان میدهد که مدفوع (که میتواند به طور بالقوه در همه انواع نمونههای محیطی وجود داشته باشد) و بزاق (که به احتمال زیاد در نمونههای مخزن خوراک و نمونههای فواره نوشیدن وجود دارد) وسایل نقلیه اولیه برای انتقال تماس بودند. ریزش گذرا ویروسی خوکهای گروه 2 (شکلهای 2 و 3) به اتاق 2 معرفی نشد، جایی که آنها با خوکهای گروه 4 زندگی مشترک داشتند.
جدول 3. بارهای CSFV نمونه های محیطی از اتاق های آزمایش.
3.7. IFN خاص CSFV- -ترشح PBMC
سلول های ترشح کننده IFN{1} اختصاصی CSFV در PBMCs خوکچه های گروه 2 تا 5 بین 7 تا 35 DPE مورد بررسی قرار گرفتند (شکل 4). در خوکهای گروه 2، تعداد سلولهای ترشحکننده IFN، اگرچه در فرکانس کمتر از 0.1 درصد از PBMCها، به طور قابلتوجهی بیشتر از گروههای 3، 4 و 5 بود. بین 7 تا 35 DPE تعداد سلولهای ترشحکننده IFN در Piglet 8134 از گروه 2، که دارای ویرمی گذرا TD/96 در یک بازه زمانی مشابه بودند (شکل 2A)، با تعداد قابلتوجه کمتر 56 (21 DPE) و 62 (28) مرتبط بود. DPE؛ میانگین گروه بزرگتر یا مساوی 116)؛ با این حال، این اعداد با 35 DPE به میانگین گروه رسید. تعداد سلولهای ترشح کننده IFN{28} ویژه CSFV در گروههای 3، 4 و 5 تفاوت معنیداری نداشت.

شکل 4. سلول های ترشح کننده IFN{2} اختصاصی CSFV در PBMCs خوکچه های گروه 2 تا 5 بین 7 تا 35 DPE مورد بررسی قرار گرفت. خوکچه های گروه 2 با واکسیناسیون LPC در 0 DPE و آنهایی که در گروه 3 بدون واکسیناسیون LPC بودند با خوکچه اهداکننده CSFV گروه 1 از 7 تا 17 DPE زندگی مشترک داشتند. خوکچه های گروه 4 و 5 به ترتیب با گروه های 2 و 3 از 17 تا 35 DPE زندگی مشترک داشتند. مقادیر با حروف مختلف a و b نشاندهنده تفاوت آماری معنیدار (p < 0.05) از یکدیگر است. هیچ تفاوت معنی داری بین مقادیر حاوی یک حرف وجود ندارد
3.8. NAهای ضد CSFV
NAs ضد CSFV در سرم خوکچه در پاسخ به سویه LPC (شکل 5A) یا سویه TD/96 (شکل 5B) تولید شد. NAهای ضد CSFV در اهداکننده CSFV گروه 1 بین 7 تا 17 DPE شناسایی نشد. سرم خوکچههای گروههای 2 تا 5 در {{1{17}}}} DPE تیترهای بین 5 تا 7 log2 (بین 32- و 128- برابر) را نشان داد. پس از اینکه خوکهای گروه 2 با واکسن LPC واکسینه شدند و با اهداکننده CSFV زندگی مشترک کردند، میانگین تیتر بین 0 و 28 DPE کاهش پیدا نکرد. با توجه به افزایش NAs ضد LPC در Piglet 8134 از 31-35 DPE، میانگین تیتر گروه 2 به طور قابل توجهی افزایش یافت. در خوکهای گروه 3 بدون واکسیناسیون LPC که با اهداکننده CSFV زندگی مشترک داشتند، میانگین تیتر به تدریج بین 0 تا 28 DPE کاهش یافت. همانطور که تیتر Piglet 8138 به تدریج بین 21 و 35 DPE افزایش یافت، میانگین تیتر گروه 3 برعکس بین 31 تا 35 DPE افزایش یافت. میانگین تیترهای گروه 4 و 5 در طول زمان کاهش یافت. به طور کلی، نمایه ضد TD/96 NA هر گروه به موازات پروفایل های ضد LPC NA بود، اگرچه میانگین ضد TD/96 NA بین 1.3 تا 3.7 log2 (تقریباً 2-{46}}برابر) بود. شکل 5B)، که کمتر از میانگین NA ضد LPC بود.

شکل 5. NAهای ضد LPC (A) یا TD/96 (B) در سرم خوکچههای هر گروه در طول دوره آزمایشی. خوکچه گروه 1 به طور کنایه آمیزی با TD/96 در 7 DPE تلقیح شد و به عنوان اهداکننده CSFV (یعنی مهاجم اولیه) عمل کرد، پس از آن با خوکهای گروه 2 و 3 از 7 تا 17 DPE همزیستی کرد. خوکهای گروه 2 با LPC در 0 DPE واکسینه شدند و خوکهای گروه 3 با LPC واکسینه نشدند. خوکچه های گروه 4 و 5 به ترتیب با گروه های 2 و 3 از 17 تا 35 DPE زندگی مشترک داشتند.
نیمه عمر تخمینی MDAهای مشتق شده از تیتر آنتی بادی خوکچه های گروه 4 که از طریق آغوز خروس های واکسینه شده با LPC منتقل شده بودند 10.7 روز بود (شکل 5A). این تخمین توسط تب و علائم بالینی منفی (جدول 1)، ویرمی منفی، بزاق و بارهای ویروسی مدفوع (شکل 2 و 3) و بافت ها (جدول 2؛ بخش 3.9 را ببینید) و نمونه های محیطی (جدول 3) پشتیبانی می شود. ) از خوکچه های گروه 4، که نشان داد در طول دوره آزمایشی به ویروس TD/96 آلوده نشده بودند.
3.9. ایمونوهیستوشیمی تشخیص سیگنال های آنتی ژن CSFV در نمونه های بافت کالبد شکافی
سیگنالهای CSFV TD/96 در بافتهای لنفاوی اهداکننده CSFV گروه 1 (شکل 6I)، یک خوکچه در گروه 2 (خوکک 8134، که دارای بارهای CSFV در خون بود که در بالاترین سطح TCID50 104.9 بود، شناسایی شد. /mL در 24 DPE و متعاقباً به 101.7 TCID50/mL در 35 DPE کاهش یافت، در سه خوکچه در گروه 3، و از سه خوک در گروه 5. خوکچه های گروه 4 برای TD/96 مثبت نبودند (شکل 6J). سیگنال های قوی CSFV TD/96 به طور گسترده در لوزه ها، طحال و غدد لنفاوی خوکچه های گروه 1، 3 (به جز Piglet 8138) و 5 توزیع شد. برای Piglet 8134 (گروه 2) با ویرمی گذرا TD/96 سیگنال های پراکنده TD/{26}}مثبت بیشتر در نواحی پارانشیمی لوزه ها، بصل النخاع غدد لنفاوی اینگوینال و غدد لنفاوی زیر ماگزیلاری قرار داشتند (شکل 6A-D)، که با نتایج بار ویروسی مطابقت دارد. کمی سازی این بافت ها (جدول 2). مورفولوژی و توزیع سلول های TD/{29}مثبت به شدت ماکروفاژیک بود. در Piglet 8138 (گروه 3) با ویرمی گذرا TD/96، تعداد و توزیع سیگنالهای مثبت TD/{33} (شکل 6E–H) مشابه آنها در Piglet 8134 بود.

شکل 6. آنتی ژن های CSFV در بافت های لنفاوی با آنتی بادی مونوکلونال 1C7A1 مشخص شدند. یک غدد لنفاوی (A، B) و لوزه (C، D) Piglet 8134 (گروه 2)، که دارای ویرمی گذرا TD/96 بودند، سیگنال قهوه ای TD/96- مثبت را ارائه می دهند. یک غدد لنفاوی (E، F) و لوزه (G، H) Piglet 8138 (گروه 3)، که دارای ویرمی گذرا TD/96 بود، سیگنال مثبت TD/{11}}قهوهای را ارائه میدهد. یک گره لنفاوی (I) Piglet 8150 (گروه 1) یک سیگنال مثبت قهوهای رنگ پراکنده TD/{14}}در پاراکورتکس ارائه میکند. یک گره لنفاوی (J) Piglet 8146 (گروه 4) برای TD/96 منفی بود.
در Piglet 8134 (گروه 2) و Piglet 8138 (گروه 3)، هر دو با ویرمی سطح پایین گذرا (شکل 2A و 3A؛ جدول 2)، آنتی ژن های CSFV هنوز در ماکروفاژهای بافتی لوزه ها قابل تشخیص بودند (شکل 6A-H) که دوباره نشان داد که لوزه ها بافت ایده آلی برای تشخیص CSFV هستند.
4. بحث
واکسیناسیون برای پیشگیری و کنترل CSF در مناطق آندمیک CSF بسیار مهم است. روشی که به طور گسترده مورد استفاده قرار می گیرد، ارائه MDA به نوزادان از طریق آغوز خروس های واکسینه شده و سپس تجویز یک دوز واحد از MLV (مانند LPC) در سن 3 تا 6 هفتگی خوکچه ها است. این روش برای گروه 2 در مطالعه حاضر به کار گرفته شد (شکل 1). بسیاری از عوامل، از جمله کیفیت واکسن، روشهای برنامه واکسیناسیون (به عنوان مثال، برنامهها، انواع و مسیرها)، و سطح MDA خوکها و وضعیت سلامت (از جمله تنوع فردی)، میتوانند بر اثربخشی واکسیناسیون CSFV تأثیر بگذارند و محافظت در برابر عفونت را کاهش دهند [14- 16]. در مطالعه حاضر، اگرچه خوکچههای گروه 2 و 3 سطوح MDA بالایی در 1:32-{11}} برابر در ۷ DPE داشتند (شکل 5A؛ یعنی 0 DP1C با اهداکننده CSFV گروه 1. شکل 1)، MDA ها پیشرفت عفونت را به تاخیر انداختند، همانطور که با ظهور دیررس ویرمی در 10 DP1C نشان داده شد (گروه های 2 و 3؛ شکل 2A). این باعث شد که خوکها بدون علامت باشند (جدول 1)، اگرچه برخی از خوکها هنوز ویروس را در بزاق و مدفوع خود دفع میکنند (شکل 2B، C). این دفع کننده های ویروسی گاه به گاه در گروه 2 نشان دهنده تغییرات فردی در وضعیت سلامت گروه یا پاسخ های ایمنی تجزیه و تحلیل شده در این مطالعه بود. MDA ها به تنهایی می توانند محافظت نسبی را قبل از تکثیر ویروس در خون و بافت ارائه دهند. سطح anti-CSFV TD/96 NA پس از واکسیناسیون LPC (شکل 5B) به طور مثبت تبدیل نشد، حتی پس از اینکه خوکها با مهاجم اولیه گروه 1 زندگی مشترک داشتند. این احتمالاً به این دلیل رخ داده است که سطح MDA در واقع با اثربخشی MLV و به دلیل ماهیت سرکوبگر سیستم ایمنی مهاجم CSFV TD/96 تداخل دارد.

cistanche tubulosa - بهبود سیستم ایمنی
تیترهای NAs و CMI ضد CSFV که با تعداد سلولهای ترشح کننده IFN اختصاصی CSFV نشان داده میشوند، ارتباط نزدیکی با محافظت خوکها در برابر عفونت CSFV دارند [17،22-24]. Piglet 8134 (گروه 2)، با سطوح پایین NA anti-CSFV و تعداد کم سلول های ترشح کننده IFN اختصاصی CSFV{10}}پس از تلقیح MLV (شکل 4 و 5)، ویرمی گذرا و ریزش CSFV پس از تماس با CSFV را نشان داد. اهداکننده (شکل 2 و 3). در مقابل، سایر خوکهای گروه 2، با NAهای ضد CSFV کم اما سلولهای ترشح کننده IFN اختصاصی CSFV نسبتاً بالا به دنبال تلقیح MLV، حتی پس از زندگی مشترک با اهداکننده CSFV به مدت 10 روز، به CSFV آلوده نشدند. . علاوه بر این، اگرچه Piglet 8138 (گروه 3) دارای تیتر ضد LPC NA (بیش از {23} برابر) بدون واکسیناسیون MLV و با حداقل سلولهای ترشح کننده IFN{25} اختصاصی CSFV بود، اما CSFV گذرا را نیز نشان داد. ویرمی پس از زندگی مشترک با اهداکننده TD/96 اما تا پایان دوره آزمایشی فاقد CSFV بود. سایر خوکهای گروه 3، با سطوح پایین NA anti-LPC (کمتر از {30}} برابر) و بدون واکسیناسیون MLV، علائم بالینی شدید مرتبط با CSFV، ضایعات و بار بالای بافت CSFV را ارائه کردند که منجر به مرگ شد. مقایسه نتایج گروه های 2 و 3 که تیترها و پروفایل های ضد CSFV مشابهی داشتند (شکل 5)، نشان می دهد که CMI عامل کلیدی در پاکسازی و بهبود ویروس است. خوکچه های گروه 2 CMI بیشتری داشتند (شکل 4)، که با نمرات بالینی رایگان (جدول 1) و تمام پارامترهای آزمایش شده (شکل 2، شکل 3، و شکل 6) مطابقت دارد.
قابل ذکر است، در گروه 2 و سایر گروه ها، سطوح CMI به طور قابل توجهی افزایش نیافته است (و فقط در فرکانس کمتر از 0.1٪ از PBMCs) در طول دوره آزمایشی (شکل 4)، با وجود بچه خوک ها قرار گرفتن دائمی در معرض ریزش ویروسی اهداکننده CSFV گروه 1 و خوکچه های گروه 3 از 7-17 DPE (شکل های 2 و 3). فرکانسهای پایین سلولهای ترشحکننده IFN احتمالاً موارد زیر را منعکس میکند: (1) ماهیت سرکوبکننده سیستم ایمنی CSFV، (2) تداخل MDA، و (3) محدودیت فنی سنجشی که ما انجام دادیم. بنابراین، تعیین یک پنجره مناسب که در آن سطح MDA به اندازه کافی پایین باشد تا از تداخل جلوگیری شود و در عین حال به اندازه کافی بالا باشد تا حفاظت اولیه و تقویت CMI ضد CSFV را افزایش دهد، برای بهبود ایمنی گله ها ضروری است.
برای خوکهای گروه 2 تحت درمان با روش گسترده واکسیناسیون، ریزش گاه به گاه CSFV در بزاق و مدفوع برای مدت کوتاهی (شکل 2) در بارهای کم CSFV رخ داد (شکل 3). بنابراین، خوکچههای گروه 4 (فقط با MDA) انتقال CSFV به گروه 4 را مسدود کردند، همانطور که با نتایج منفی CSFV نمونههای محیطی جمعآوریشده از اتاق 2 (جدول 3)، فقدان تب و علائم بالینی (جدول 1) مشخص شد. ) و عدم ریزش بزاق و مدفوع و ویرمی (شکل 2 و 3) در طول زندگی مشترک. با این حال، حامل های بدون علامت CSFV در گروه 2 می تواند یک مسئولیت غیرقابل کشف در این زمینه باشد.
پاسخ ایمنی را می توان به سرعت و به طور پیوسته در خوکچه های SPF واکسینه شده با MLV القا کرد. پاسخ های ایمنی سلولی و هومورال خوکچه های واکسینه شده با MLV به ترتیب در 5 و 12 روز پس از واکسیناسیون در ابتدایی ترین زمان نشان داده می شود [14-16،22]. هنگامی که MLV در گله های تجاری استفاده می شود، MDA ها کارایی MLV را کاهش می دهند. در مطالعه حاضر، CMI خوکهای گروه 2 با سطوح MDA قابلتوجه به سرعت در 0 DP1C افزایش یافت (7 DPE؛ شکل 4؛ یعنی بسیار سریعتر از خوکهای SPF بدون MDA)، اگرچه نه آنتیبادی و نه CMI نمایه ها به طور چشمگیری تغییر کردند (شکل 4 و 5). چنین افزایش سریعی در 7 DPE (شکل 4) پس از واکسیناسیون LPC نشان می دهد که آغوز ممکن است علاوه بر MDA، اجزای ایمونولوژیک دیگری را نیز فراهم کند که باعث ایجاد پاسخ آنامنستیک مانند می شود.
NA های ضد CSFV معمولاً برای ارزیابی کارایی واکسن و بررسی عفونت CSFV در گله ها استفاده می شود. با توجه به سویه CSFV، تیتر NAs ضد CSFV در برابر سویه های همولوگ (به عنوان مثال، LPC ژنوتیپ 1.1) بالاتر از سویه های ناهمگن است (مثلا TD/96 ژنوتیپ 2.1) و در این مطالعه، log{7}}.3 تا 3.7 (شکل 5A) بالاتر از سویه TD/96 (شکل 5B) بود [14]. تفاوت تیتر NA مشابهی نیز در سویه های مختلف ویروس سندرم تنفسی و تولید مثل خوک (PRRSV) و SARS-CoV{16}} مشاهده شد [25،26]. از آنجایی که MDAها یک عامل تداخل حیاتی برای اثربخشی MLV هستند، برنامه واکسیناسیون بهینه برای تلقیح MLV در خوکها زمانی است که MDAهای خوکها کمتر از 1:{20}}برابر تیتر ضد LPC NA باشد. بنابراین، زمان بهینه واکسیناسیون MLV در مطالعه حاضر 28 DPE بود، که با تخمین ما که نیمه عمر MDAها 10.7 روز بود (گروه 2؛ شکل 5A) و مشابه نتایج تجزیه و تحلیل ضد تیترهای LPC NA گروه های 4 و 5. به طور متناقض، 32-سطح برابری تیتر NA ضد CSFV (تقریبا معادل 1:{34}}برابر NAs ضد LPC) به عنوان شاخص محافظتی در نظر گرفته می شود. عفونت CSFV [17]. بیشتر خوکچههای گروههای 4 و 5 کمتر از 1:{40}}برابر TD/96 تیتر NA از 7 DPE به بعد داشتند. بنابراین، دوره زمانی که سطوح MDA به طور مناسب پایین است تا با واکسیناسیون MLV تداخل نداشته باشد، اما به اندازه کافی بالا باشد تا محافظ باشد، باریک است، در حالی که پنجره خطر عفونت CSFV گسترده است. دوره مناسب برای واکسیناسیون MLV را می توان تنها در صورتی تمدید کرد که MLV از سویه های همولوگ تولید شده باشد، که معمولاً در اکثر مناطق آندمیک CSFV در دسترس نیستند.
ایمنی گله با گسترش پاتوژن در پیشگیری و کنترل بیماری ها ارتباط منفی دارد. افزایش ایمنی گله می تواند هم حساسیت به عفونت و هم میزان ریزش پاتوژن را در گله کاهش دهد [27،28]. واکسیناسیون معمولاً به عنوان یک ابزار مستقیم و سریع برای افزایش ایمنی گله استفاده می شود. نشان داده شده است که بهبود پوشش ایمنی گله از طریق ایمن سازی واکسن برای کاهش انتشار پاتوژن برای کنترل PRRSV، سیرکوویروس خوک نوع 2، CSFV، ویروس کاذب و SARS-CoV موثر است [29-36]. در مطالعات CSFV، تجویز هر دو واکسن زیرواحد MLV و E2 نیز انتقال CSFV را در گله کاهش داد [14-16،22،32]. در مطالعه حاضر، اگرچه چند خوک واکسینه شده با MLV ویرمی و ریزش گذرا CSFV را نشان دادند (گروههای 2 و 3؛ شکلهای 2 و 3)، تلقیح MLV نه تنها محافظت کاملی از خوکهای واکسینه شده ارائه کرد، بلکه تضمین کرد که سویه TD/96 از مهاجم اولیه (گروه 1) به گروه تهاجم ثانویه (گروه 4) منتقل نشد. در مقابل، TD/96 از اهداکننده CSFV گروه 1 به گروه 3 (بدون واکسیناسیون MLV) و به گروه 5 گسترش یافت، که نشان می دهد واکسیناسیون MLV علیه CSFV می تواند انتقال CSFV را مسدود کند، بنابراین احتمال ریشه کنی CSFV را با کاهش ارزش افزایش می دهد. شماره تولید مثل اصلی (R{24}}) پاتوژن [28]. پوشش واکسن گستردهتری برای ریشهکنی بیماریهای دارای پاتوژنهای با R{27} بالا مورد نیاز است. R{28}} CSFV با حدت سویه و دوز تلقیح CSFV مرتبط است. سطوح پاتوژن R{29} در دوزهای تلقیح متوسط و تلقیح بالا یک سویه با حدت متوسط و دوز تلقیح پایین یک سویه بسیار خطرناک به طور قابل ملاحظه ای بالاتر از دوز تلقیح بالا از یک سویه با حدت کم است. کرنش [13]. این نتایج نشان می دهد که پوشش ایمنی گله بیشتری در مناطق آندمیک CSF با سویه های CSFV متوسط یا بسیار بدخیم مورد نیاز است.
سلول های دودمان مونوسیت-ماکروفاژ سلول های تروپیسم CSFV هستند که در انتقال CSFV نقش دارند [37-39]. در مطالعه حاضر، خوکچه هایی که بهبود یافته بودند سالم و بدون علامت بودند. با این حال، CSFV میتواند دائماً در بافتهای لنفاوی آلوده و پنهان شود (شکل 6)، بنابراین از پاکسازی سیستم ایمنی جلوگیری میکند. این همچنین استفاده از بافت های لنفاوی را به عنوان نمونه های ایده آل برای تشخیص پشتیبانی می کند. عفونت ویروسی مداوم نیز با CSFV، ویروس نقص ایمنی انسانی نوع 1 و ویروس سنسیشیال تنفسی مشاهده شده است [40-42]. CSFV توانایی تغییر بیان سیتوکینها، گیرندههای سیتوکین، کموکاینها، اینترفرونها و گیرندههای شبه تلفات را در ماکروفاژها دارد که منعکسکننده ماهیت سرکوبکننده سیستم ایمنی آن و تقریباً غیرفعال بودن آنتیبادی (شکل 5) و پروفایل CMI (شکل 4) است. خوکهای تجربی، علیرغم مواجهه مستمرشان با ریزش CSFV در بزاق و مدفوع مهاجمان اولیه (گروه 1) و ثانویه (گروه 3). تنظیم ایمنی خوکها پس از عفونت CSFV در عوامل پیش التهابی (IL{11}}، IL{12}}، IL{13}} و MCF) و عوامل ضد ویروسی (IFN- و ) [43] افزایش مییابد. با این حال، مکانیسم های تکامل یافته و عفونت مداوم CSFV نامشخص است.

فواید سیستانچ برای مردان - تقویت سیستم ایمنی بدن
5. نتیجه گیری ها
MDA ها به دنبال واکسیناسیون MLV می توانند ایمنی کافی، به ویژه CMI را القا کنند و پاکسازی و بهبودی ویروس را ممکن می سازند. اگرچه تعداد کمی از خوکهای واکسینه شده با MLV ویرمی سطح پایین و ریزش ویروس در بزاق و مدفوع خود داشتند، انتقال CSFV به شخص ثالث (گروه 4) میتواند از طریق واکسیناسیون MLV مسدود شود، بنابراین R{3}} CSFV کاهش مییابد. و افزایش احتمال ریشه کنی CSF.
منابع
1. WOAH. فصل 15.2: عفونت با ویروس تب کلاسیک خوکی. در کد بهداشت حیوانات زمینی; WOAH: پاریس، فرانسه، 2022.
2. گنگ، ال. کروک، HR; بوهورکز، جی. پستل، آ. ساکودا، ی. بچر، پی. Ruggli، N. ویروس تب کلاسیک خوکی: گذشته، حال و آینده. ویروس Res. 2020، 289، 198151. [CrossRef] [PubMed]
3. WOAH (سیستم اطلاعات بهداشت جهانی حیوانات). تب کلاسیک خوکی: وضعیت رسمی بیماری. در دسترس آنلاین: www.woah. org/en/disease/classical-swine-fever/#ui-id-2 (دسترسی در ۱ سپتامبر ۲۰۲۲).
4. ساوایی، ک. نیشی، تی. فوکای، ک. کاتو، تی. هایما، ی. یاماموتو، T. تجزیه و تحلیل فیلوژنتیک و فیلودینامیک شیوع ویروس تب خوکی کلاسیک در ژاپن (2018-2020). Transbound. ظهور. دیس 2022، 69، 1529-1538. [CrossRef] [PubMed]
5. De Oliveira، LG; گاتو، IRH؛ Mechler-Dreibi، ML; Almeida، HMS; سونالیو، ک. Storino، GY دستاوردها و چالش های ریشه کنی تب کلاسیک خوکی در برزیل. Viruses 2022, 12, 1327. [CrossRef] [PubMed]
6. ژو، ایکس. لیو، ام. وو، ایکس. ما، دبلیو. Zhao، X. تجزیه و تحلیل فیلوژنتیکی جدا شده ویروس تب خوکی کلاسیک از چین. قوس. ویرول. 2021، 166، 2255-2261. [CrossRef] [PubMed]
7. Lindenbach، BD; تیل، اچ جی; برنج، CM Flaviviridae: ویروس ها و تکثیر آنها. در فیلدز ویروس شناسی، ویرایش پنجم. Knipe، DM، Howley، PM، Griffin، DE، Eds. Lippincott Williams & Wilkins: Philadelphia, PA, USA, 2007; صص 1101–1152.
8. پاتون، دی جی; مک گلدریک، ای. گریزر-ویلکه، آی. پرچاریانون، س. آهنگ، JY; لیو، پی پی. Stadejek، T. Lowings، JP; بیورکلوند، اچ. بلک، اس. تایپ ژنتیکی ویروس تب کلاسیک خوکی. دامپزشک میکروبیول. 2000، 73، 137-157. [CrossRef] [PubMed]
9. Depner، KR; Hinrichs، U. بیکهارت، ک. گریزر-ویلکه، آی. پولنز، جی. مونیگ، وی. Liess, B. تأثیر عوامل مرتبط با نژاد در سیر عفونت ویروسی تب خوکی کلاسیک. دامپزشک ضبط 1997، 140، 506-507. [CrossRef]
10. فلوگل-نیزمان، جی. بوزنتال، سی. فیشر، اس. Moennig, V. ویروسی بودن جدایه های ویروس تب کلاسیک جدید و سابق تب خوکی با علائم بالینی و پاتولوژیک آنها ارزیابی شد. J. Vet. پزشکی سر. B 2003, 50, 214-220. [CrossRef]
11. مونیگ، وی. فلوگل-نیزمان، جی. گریزر-ویلکه، I. علائم بالینی و اپیدمیولوژی تب کلاسیک خوکی: مروری بر دانش جدید. دامپزشک J. 2003, 165, 11-20. [CrossRef]
12. دیورند، بی. داویلا، اس. کاریولت، آر. مسپلد، ا. Le Potier، MF مقایسه برآوردهای مبتنی بر ویرمی و بالینی از درون و بین قلم انتقال ویروس کلاسیک تب خوکی از سه آزمایش انتقال. دامپزشک میکروبیول. 2009، 135، 196-204. [CrossRef]
13. ویسندرپ، ای. پشتیبان، جی. استگمن، ا. Loeffen, W. اثر سویه و دوز تلقیح ویروس تب خوکی کلاسیک بر انتقال درون قلم. دامپزشک Res. 2009، 40، 59. [CrossRef]
14. هوانگ، یل. دنگ، ام سی; وانگ، فی. هوانگ، سی سی; Chang، CY چالشهای کنترل تب خوکی کلاسیک: زندگی اصلاحشده و واکسنهای زیر واحد E2. ویروس Res. 2014، 179، 1-11. [CrossRef] [PubMed]
15. صورادات، س. دامرونگ واتاناپوکین، اس. Thanawongnuwech، R. عوامل حیاتی برای واکسیناسیون موفقیت آمیز علیه تب کلاسیک خوکی در مناطق آندمیک. دامپزشک میکروبیول. 2007، 119، 1-9. [CrossRef] [PubMed]
16. Van Oirschot، JT واکسینولوژی تب کلاسیک خوکی: از آزمایشگاه به مزرعه. دامپزشک میکروبیول. 2003، 96، 367-384. [CrossRef]
17. ترپسترا، سی. Wensvoort، G. ارزش حفاظتی تیتر آنتی بادی خنثی کننده ناشی از واکسن در تب خوکی. دامپزشک میکروبیول. 1988، 16، 123-128. [CrossRef]
18. Vandeputte، J. همچنین HL; Ng، FK; چن، سی. چای، KK; Liao، GA جذب آنتیبادیهای آغوز علیه تب کلاسیک خوکی، تداوم آنتیبادیهای مادر، و تأثیر بر پاسخ به واکسیناسیون در بچه خوکها. صبح. J. Vet. Res. 2001، 62، 1805-1811. [CrossRef] [PubMed]
19. ما، WJ; چن، QL; Chang، CC بررسی عملکرد آنتی بادی و حضور RNA ویروسی قبل و بعد از واکسیناسیون سویه واکسن کلاسیک تب خوکی در مزارع خوک تایوان. دامپزشک تایوان J. 2010, 36, 45-54.
20. Mittelholzer1, C.; موزر، سی. Tratschin، JD; Hofmann, MA تجزیه و تحلیل سینتیک های تکثیر ویروس تب خوکی کلاسیک امکان تمایز سویه های بسیار خطرناک از غیر بیماریزا را فراهم می کند. دامپزشک میکروبیول. 2000، 74، 293-308. [CrossRef]
21. هوانگ، یل. پنگ، VF; پان، CH; چن، تی. جونگ، MH; هوانگ، تی اس؛ Jeng, CR توسعه یک PCR بلادرنگ مالتی پلکس رونویسی معکوس برای تشخیص و تعیین ژنوتیپ ویروس کلاسیک تب خوکی. جی. ویرول. Methods 2009, 160, 111-118. [CrossRef]
22. هوانگ، یل. مایر، دی. پستل، آ. Tsai، KJ; لیو، اچ ام. یانگ، CH; هوانگ، YC; برکلی، ن. دنگ، ام سی; وانگ، فی. و همکاران شناسایی یک اپی توپ ساختاری رایج بر روی گلیکوپروتئین E2 ویروس کلاسیک تب خوکی و ویروس بیماری مرزی ویروسها 2021، 13، 1655. [CrossRef]
23. گراهام، SP; اورت، او؛ هاینز، اف جی. جانز، اچ ال. سوسان، OA; سالگوئرو، اف جی؛ کلیفورد، دی جی؛ اشتاینباخ، اف. درو، TW; Crooke، H. چالش خوکها با ویروسهای تب خوکی کلاسیک پس از واکسیناسیون سویه C، حفاظت سریع و بینشهایی را نسبت به ایمنی اولیه نشان میدهد. PLoS ONE 2012, 7, e29310. [CrossRef]
24. گراهام، اس پی; هاینز، اف جی. جانز، اچ ال. سوسان، او. روکا، سال. لامپ، بی. رومناپف، تی. اورت، اچ. کروک، اچ. مشخصهسازی پاسخهای سلولهای T ترشحکننده IFN با واکنش متقابل القا شده توسط واکسن که با محافظت سریع در برابر ویروس تب خوکی کلاسیک مرتبط است. واکسن 2012، 30، 2742-2748. [CrossRef] [PubMed]
25. صورادات، س. Intrakamhaeng، M. Damrongwatanapokin، S. همبستگی تولید اینترفرون گاما ویژه ویروس و محافظت در برابر عفونت ویروسی تب خوکی کلاسیک. دامپزشک ایمونول. ایمونوپاتول. 2001، 83، 177-189. [CrossRef] [PubMed]
26. پلاناس، دی. ویر، دی. بایدالیوک، ا. استاروپولی، آی. Guivel-Benhassine، F. راجه، م.م. پلانچیز، سی. پوروت، اف. روبیلارد، ن. پوچ، جی. و همکاران کاهش حساسیت SARS-CoV{3}} واریانت دلتا به خنثی سازی آنتی بادی. طبیعت 2021، 596، 276-280. [CrossRef]
27. ژانگ، سی. واکسنهای ویروسی سندرم تنفسی و تولید مثلی خوک Hu, J.: وضعیت فعلی و استراتژیها برای یک واکسن جهانی. Transbound. ظهور. دیس 2014، 61، 109-120.
28. آندره، FE; بوی، آر. Bock، HL; کلمنس، جی. داتا، SK; جان، تی جی; لی، BW; لولخا، س. پلتولا، اچ. راف، TA; و همکاران واکسیناسیون تا حد زیادی بیماری، ناتوانی، مرگ و نابرابری را در سراسر جهان کاهش می دهد. گاو نر ارگان بهداشت جهانی. 2008، 86، 140-146. [CrossRef] [PubMed]
29. رز، ن. Andraud، M. استفاده از واکسن برای کنترل گسترش پاتوژن در جمعیت خوک. مدیریت سلامت خوک. 2017، 3، 8. [CrossRef] [PubMed]
30. آندرود، م. گرسلند، بی. دیورند، بی. کاریولت، آر. جستین، ا. مادک، اف. رز، N. تعیین کمیت سیرکوویروس نوع 2 خوک (PCV{2}}) انتقال درون و بین قلم در خوک ها. دامپزشک Res. 2008، 39، 43. [CrossRef]
31. رز، ن. آندرود، م. بیگالت، ال. جستین، ا. Grasland، B. یک واکسن تجاری مبتنی بر PCV2 به طور قابل توجهی انتقال PCV2b را در شرایط تجربی کاهش می دهد. واکسن 2016، 34، 3738-3745. [CrossRef]
32. رز، ن. رنسون، پی. آندرود، م. پابویف، اف. لو پوتیه، MF; Bourry، O. ویروس سندرم تنفسی و تولید مثلی خوک (PRRSv) واکسن زنده اصلاح شده انتقال ویروس را در شرایط تجربی کاهش می دهد. واکسن 2015، 33، 2493-2499. [CrossRef]
33. بوما، ع. دی اسمیت، ای جی؛ دی یونگ، MCM؛ De Kluijver، EP; Moormann، RJM تعیین شروع ایمنی گله ای ناشی از واکسن زیر واحد E2 در برابر ویروس کلاسیک تب خوکی. واکسن 2000، 18، 1374-1381. [CrossRef]
34. دی اسمیت، ای جی; بوما، ا. Van Gennip، HGP; De Kluijver، EP; ویروسهای سویه C Moormann، RJM Chimeric (نشانگر) محافظت بالینی را در برابر ویروس تبخیر کلاسیک خوکی (CSFV) القا میکنند و انتقال CSFV را بین خوکهای واکسینه شده کاهش میدهند. واکسن 2001، 19، 1467-1476. [CrossRef] [PubMed]
35. ون نس، ا. Stegeman، JA; دی یونگ، MCM؛ لوفن، WLA; کیمن، تی جی؛ Verheijden, JHM هیچ شیوع عمده ای از ویروس کاذب در گله های خروس ایمن شده به خوبی وجود ندارد. واکسن 1996، 14، 1042-1044. [CrossRef] [PubMed]
36. Shrestha، NK; بورک، رایانه شخصی؛ Nowacki، ع. ترپلوک، پ. گوردون، اس ام ضرورت بیماری کروناویروس 2019 (COVID-19) واکسیناسیون در افرادی که قبلاً COVID-19 داشته اند. کلین آلوده کردن دیس 2022، 75، e662–e671. [CrossRef] [PubMed]
37. گومز-ویلاماندوس، جی سی. رویز-ویلامور، ای. باوتیستا، ام جی; سانچز، سی. سانچز-کوردون، پی جی. سالگوئرو، اف جی؛ Jover, A. Morpho تغییرات منطقی و ایمونوهیستوشیمیایی در ماکروفاژهای طحالی خوکهای آلوده به تب کلاسیک خوکی. J. Comp. پاتول. 2001، 125، 98-109. [CrossRef]
38. سانچز-کوردون، پی جی; رومانینی، اس. سالگوئرو، اف جی؛ رویز-ویلامور، ای. کاراسکو، ال. Gómez-Villamandos, JC یک مطالعه هیستوپاتولوژیک، ایمونوهیستوشیمی و فراساختاری روده در خوک های تلقیح شده با ویروس تب خوکی کلاسیک. دامپزشک پاتول. 2003، 40، 254-262. [CrossRef]
39. Sah, V. کومار، ا. دار، پ. آپمانیو، وی. تیواری، AK; Wani، SA; Sahu، AR; کومار، ا. باداسارا، SK; پاندی، ا. و همکاران امضای بیان ژن در کل ژنوم در ماکروفاژهای کلاسیک آلوده به ویروس تب خوکی و PBMCs خوکهای دورگه بومی vis-a-vis. Gene 2020, 731, 144356. [CrossRef]
40. کورونادو، ال. بوهورکز، جی. مونوز-گونزالس، اس. پرز، ال جی. راسل، آر. فونسکا، او. دلگادو، ال. پررا، CL; فریاس، MT; Ganges, L. بررسی عفونت های مزمن و مداوم تب کلاسیک خوکی در شرایط مزرعه و تأثیر آنها بر کارایی واکسن. BMC Vet. Res. 2019، 15، 247. [CrossRef]
41. ریورا-تولدو، ای. گومز، ب. ماندگاری ویروس سنسیشیال تنفسی در ماکروفاژها نمایه بیان ژن سلولی را تغییر میدهد. ویروس ها 2012، 4، 3270-3280. [CrossRef]
42. کرویز، ز. Kootstra, NA نقش ماکروفاژها در تداوم و پاتوژنز HIV{1}. جلو. میکروبیول. 2019، 10، 2828. [CrossRef]
43. Borca، MV; گودمونددوتیر، آی. فرناندز-ساینز، آی جی; هولینکا، ال جی؛ Risatti، GR الگوهای بیان ژن سلولی در ماکروفاژهای خوکی آلوده به سویه ویروس تب کلاسیک خوکی بسیار بدخیم Brescia. ویروس Res. 2008، 138، 89-96. [CrossRef]